

PGC-1 pärsib NLRP3 põletikku, säilitades mitokondriaalse elujõulisuse, et kaitsta neerufibroosi
Dec 15, 2023
SISSEJUHATUS
Krooniline neeruhaigus(CKD) on ülemaailmne terviseprobleem ja selle levimus on kogu maailmas kasvanud [1–3].Kroonilise neeruhaigusega patsiendidneil on suurem risk progresseeruda lõppstaadiumis neeruhaiguseks ja suremus [4, 5]. Seetõttu on oluline leida tõhusad terapeutilised sihtmärgid, et vältidaCKD progresseerumine. Neeru tubulointerstitsiaalnepõletik ja fibrooson peamised patoloogilised tunnusedCKD progresseerumine[6–8]. Neeru torukujulised epiteelirakud(RTEC) on vedeliku ja elektrolüütide homöostaasi säilitamiseks hädavajalikud ning moodustavad 90% neerude massist. RTEC-d kindlustavad ohtralt mitokondreid ja neil on kõrge peroksisomaalse proliferaatoriga aktiveeritud retseptori (PPAR) ja peroksisomaalse proliferaatori-koaktivaatori-1 (PGC-1) tase, et täita nende metaboolset ja funktsionaalset energiavajadust [9]. Kasvavad tõendid viitavad sellele, et mitokondriaalne düsfunktsioon, mida iseloomustab arvu vähenemine ja kristallide depolariseerumine, turse ja katkemine, soodustab suuresti neerufibroosi [10, 11]. Kahjustatud mitokondrid ei tooda tõhusalt adenosiintrifosfaati (ATP) ja eraldavad liigseltreaktiivsed hapniku liigid(ROS) ja mitokondriaalne DNA (mtDNA), mis vallandavad järelikult allavoolu põletikulisi reaktsioone ja põhjustavad rakusurma ja torukujulisi vigastusi.
NOD-sarnase retseptori perekonda püriini domeeni sisaldav 3 (NLRP3) osaleb mitmesugustes peremeesorganismis kaasasündinud immuunvastustes mikroobsetele ja mittemikroobsetele stiimulitele [12, 13]. Mitmed kahjustatud ja surevatest rakkudest vabanevad patogeenid ja endogeensed ohusignaalid aktiveerivad NLRP3 ja põhjustavad valgukompleksi, mida nimetatakse põletikuliseks [14]. NLRP3 inflammasoom kutsub seejärel esile kaspaasi-1 automaatse töötlemise ja aktiveerimise, mille tulemuseks on protsütokiinide lõhustamine küpseks IL-1 ja IL-18. Hiljuti on NLRP3 põletikku seostatud neerukahjustuse ja fibroosi patogeneesiga [15–17]. Erinevates neeruhaiguste loommudelites aktiveeritakse NLRP3 põletikurada ja selle lõppproduktid IL-1 ja IL-18 võivad põhjustada neerutuubulite kahjustusi [16–19]. Huvitav on see, et neerusisesed rakud, nagu RTEC-d ja podotsüüdid, ekspresseerivad NLRP3, mis viitab NLRP3 põletikulise signaaliülekande potentsiaalsele rollile rakukahjustuses [20, 21]. Veelgi enam, hiljutised uuringud on näidanud potentsiaalset koostoimet mitokondriaalse düsfunktsiooni ja NLRP3 põletikulise aktivatsiooni vahel neerutuubulite kahjustuse mudelites [22–24]. Siiski pole teada, kas PGC-1, peamine mitokondriaalse biogeneesi regulaator, suudab reguleerida NLRP3 rada mitokondriaalse dünaamika moduleerimise kaudu.
Seega uurisime PGC -1 rolli NLRP3 põletikulise aktivatsiooni reguleerimisel RTEC-des. Eelkõige uurisime, kas PGC -1 aktiveerimisest või supressioonist põhjustatud muutunud mitokondriaalne elujõulisus ja dünaamika võivad reguleerida NLRP3 põletikurada ja seegamõjutada neerukahjustusi.

Wecistanche'i tugiteenus - Hiina suurim tsistanšeksportija:
E-post:wallence.suen@wecistanche.com
Whatsapp/Tel:+86 15292862950
Lisateabe saamiseks ostke:
https://www.xjcistanche.com/cistanche-shop
SAAN 25% EHHINAKOOSIIDI JA 9% AKTEOSIIDIGA LOODUSLIK ORGAANILINE KISTANŠEKSTRAKT NERENFEKTSIOONIDE PUHUL
MEETODID
Rakukultuurid, TGF- 1, PGC-1 aktivaatori töötlemine ja transfektsioon primaarsetesse RTEC-desse RTEC-d eraldati C57BL/6 hiirtelt. Lühikest meetodit kirjeldatakse jaotises Täiendavad meetodid. Subkonfluentsed RTEC-d piirati FBS-iga 24 tunniks ja seejärel asendati sööde kontrollrühma jaoks 1% FBS DMEM söötmega ja sama söötmega TGF- 1 (5 ng/ml) (R&D Systems, Minneapolis, MN , USA) rühma TGF- 1 jaoks. RTEC-d koguti RNA ja valgu analüüside jaoks 48 tundi pärast söötme muutmist. PGC-1 aktivaatorit, metformiini (1 mM) töödeldi nii kontroll- kui ka TGF- 1 rühmas. Ravimi annused määrati meie eelnevate testide põhjal. Lisaks transfekteeriti rakke ka Ppargc1a plasmiidiga (1 ug) (Addgene, Cambridge, MA, USA) ja Ppargc1a väikese segava RNA-ga (siRNA), kasutades Lipofectamine 2000 ja Plus reagente (Invitrogen, Carlsbad, CA, USA). Järgmisena, 6 tundi pärast transfektsiooni, vahetati sööde seerumivaba söötme vastu ja rakke inkubeeriti veel 48 tundi. Drp1 ekspressiooni pärssimiseks lööme Drp1 geeni alla lentiviirusega, mis sisaldab Drp1-d, mis on suunatud lühikese juuksenõela RNA-le (shRNA), et nakatada RTEC-sid (lahkelt kingituseks dr. Yu J, Yonsei ülikooli meditsiinikolledž) [25]. NLRP3 põletikulise ja mitokondriaalse vigastuse vahelise seose edasiseks uurimiseks hankisime RTEC-d ka Nlrp3 knockout hiirtelt (lahkelt andekas dr Yu J, Yonsei ülikooli meditsiinikolledž).
Loomade uurimine ja ravi
Isased C57BL/6 hiired (6 nädala vanused, algkaal 20 g) osteti firmast The Jackson Laboratory (Bar Harbor, ME, USA). Loomi hoiti kontrollitud temperatuuriga ruumis (22 kraadi) 12-tunnise valguse/pimeduse tsüklis. Kõik loomad määrati juhuslikult. Nädal pärast saabumist jagati loomad kahte rühma ja neid toideti kuni 4 nädala jooksul kas tavalise (ND; n=10) või 0,2% adeniinisisaldusega dieediga (Ade; n=10). Nii ND kui ka Ade rühmi raviti iga päev ka metformiini intraperitoneaalse süstiga (250 mg/kg) üks nädal enne dieedi algust. Pärast 4-nädalast ND- või Ade-ravi loomad surmati ja neerud ekstraheeriti Zoletiiliga (10 mg/kg) anesteseerides (Virbac, Carros, Prantsusmaa). Ülevaatlikku meetodit ühepoolse ureteri obstruktsiooni (UUO) hiirte valmistamiseks on kirjeldatud täiendavates meetodites. Seejärel külmutati neeruproovid kohe vedelas lämmastikus ja säilitati kuni kasutamiseni -80 kraadi juures.
Reaalajas kvantitatiivne polümeraasi ahelreaktsioon, Western blot analüüsid
Kvantitatiivse polümeraasi ahelreaktsiooni (qPCR) abil võrreldi geenide, sealhulgas Ppargc1a, NLRP3 põletikuraja, mitokondriaalse dünaamika, kasvaja nekroosifaktori poolt indutseeritud valgu 3 (TNFAIP3), oksüdatiivse stressi markeri ja profibrootiliste markerite transkriptsioonitasemeid. Selles uuringus kasutatud praimerite järjestusi kirjeldati täiendavas tabelis 1. Üksikasjalikumaid meetodeid on kirjeldatud jaotises Täiendavad meetodid. PGC-1, NLRP3 põletikuraja, TNFAIP3, oksüdatiivse stressi markeri ja profibrootiliste markerite valguekspressioonitasemeid uuriti Western blot analüüsidega. Üksikasjalikke meetodeid ja teavet antikehade kohta kirjeldatakse eraldi jaotises Täiendavad meetodid.
NLRP3 põletikukoostu analüüs
Kaspaasi värbamisdomeeni (ASC) sisaldava apoptoosiga seotud täpitaolise valgu oligomerisatsiooni määramiseks viidi kirjeldatud viisil läbi disuktsiinimidüülsuberaadi (DSS) (Gibco, Thermo Fisher Scientific, Waltham, MA, USA) vahendatud ristsidumise test. varem [26]. Lühidalt, RTECS ja neerukoeproovidest võetud rakud sadestati tsentrifuugimisega ja lüüsiti 0,5 ml lüüsipuhvris, mis sisaldas 20 mM Hepes KOH, pH 7,5, 150 mM KCl, 1% NP40, 0,1 mM PMSF ja proteaasi inhibiitori kokteil jääl. Rakulüsaate tsentrifuugiti kiirusel 6000 p/min 4 kraadi juures 10 minutit. Pelleteid pesti kaks korda PBS-ga ja seejärel resuspendeeriti 500 ui PBS-is. Resuspendeeritud pelletid ristseotakse värske DSS-ga (2 mM) 30 minutit ja seejärel sadestati tsentrifuugimisega kiirusel 6000 p/min 10 minutit. Ristseotud pelletid resuspendeeriti 30 µl SDS proovipuhvris ja fraktsioneeriti 12% SDS polüakrüülamiidgeelil, millele järgnes immunoblotanalüüs ASC antikehaga (Cell Signaling Technology, MA, USA).
Oksüdatiivse stressi taseme mõõtmine
Oksüdatiivse stressi (malondialdehüüdi [MDA]) tasemeid mõõdeti RTEC-des ja neerukudedes, kasutades MDA analüüsikomplekti (Abcam, Cambridge, MA, USA). 10 mg RTEC-sid homogeniseeriti jääl 300 ul MDA lüüsipuhvris (Abcam, Cambridge, MA, USA), seejärel tsentrifuugiti (13, 000 × g, 10 min) lahustumatute materjalide eemaldamiseks. 10 ml plasmat segati toatemperatuuril 5 minutit 500 ul 42 mM H2SO4 ja 125 ul fosfovolframhappe lahusega. Pärast tsentrifuugimist (13,000 × g, 3 min) suspendeeriti pellet uuesti jääl 100 ul topeltdestilleeritud H2O-ga. Seejärel inkubeeriti 200 ul lahust ja 600 ul 2-tiobarbituurhappe lahust 95 kraadi juures 60 minutit, seejärel jahutati jäävannis toatemperatuurini 10 minutit. Neeldumise intensiivsus lainepikkusel 532 nm oli võrdeline MDA tasemega.
Mitokondrite isoleerimine
RTEC-d fraktsioneeriti tsütosooliks ja mitokondriteks, kasutades mitokondrite isolatsioonikomplekti (BioVision, Inc. CA, USA) vastavalt tootja protokollile. Lühidalt, rakud koguti ja pesti 10 ml jääkülma PBS-ga. Rakke tsentrifuugiti 600 × g juures 5 minutit 4 kraadi juures ja resuspendeeriti 1,0 ml 1 × tsütosooli ekstraktsioonipuhvris. Homogeniseerimine viidi läbi jääl ja tsentrifuugiti 1200 x g juures 10 minutit 4 kraadi juures, et eemaldada tuumad ja terved rakud. Kogutud supernatanti tsentrifuugiti 10,000 × g juures 30 minutit 4 kraadi juures. Saadud pelletid resuspendeeriti 1,0 ml 1 × tsütosooli ekstraktsioonipuhvris ja tsentrifuugiti 10, 000 × g juures 30 minutit 4 kraadi juures, et saada mitokondrid. Saadud mitokondrid lüüsiti 30 ul mitokondriaalse lüüsi puhvris ja lisati 100 ul ensüümi segule (mis sisaldub isoleerimiskomplektis) 100 ul absoluutse etanooliga. Pärast tsentrifuugimist oli saadud pelletiks mtDNA. Tsütosoolne mtDNA saadi supernatandist pärast etanooliga sadestamist. MtDNA kontsentratsioon määrati qPCR testiga.
Mitokondriaalse dünaamika ja funktsiooni hindamine
Mitokondriaalse dünaamika visualiseerimiseks kasutati mitokondrite immunofluorestsentsvärvimist MitoTracker Deep Red (Gibco, Thermo Fisher Scientific, Waltham, MA, USA). RTEC-d fikseeriti 4% paraformaldehüüdis ja blokeeriti DPBS-is, mis sisaldas 5% normaalset küüliku seerumit ja 0,1% Tweeni- 20. Seejärel värviti rakud hiirevastase NLRP3, MitoTrackeriga, millele järgnes AlexaFluor{7}}konjugeeritud kitse küülikuvastaste antikehadega (Jackson ImmunoResearch, West Grove, PA) ning lõpuks paigaldati slaidid DAPI-ga ja pildistati. Järgmisena uurisime mitokondriaalset struktuuri standardse ülekandeelektronmikroskoopia abil. Primaarsed RTEC-d fikseeriti 2% paraformaldehüüdi ja 2, 5% glutaaraldehüüdi seguga üleöö, pesti, dehüdreeriti ja sisestati vaiku vastavalt standardprotseduuridele. Mitokondreid uuriti JEOL 1011 mikroskoobi all (JEOL, Tokyo, Jaapan). Mitokondriaalse hingamissageduse hindamiseks kasutati Seahorse Bioscience ×24 rakuvälise voo analüsaatorit (Seahorse Bioscience, Billerica, MA, USA). Mitokondriaalse ROS-i tootmise mõõtmiseks resuspendeeriti rakud pärast sobivat töötlemist Hanki tasakaalustatud soolalahuses ja värviti MitoSOX-iga (Gibco, Thermo Fisher Scientific, Waltham, MA, USA) 37 kraadi juures 20 minutit. Rakkude fluorestsentsi mõõdeti voolutsütomeetriga (FACSVerse, BD Biosciences, San Jose, CA, USA). Mitokondriaalse membraani potentsiaali määramiseks kasutati tetrametüülrodamiini etüülestri (TMRE) mitokondriaalse membraani potentsiaali analüüsi komplekti (Abcam, Cambridge, MA, USA).
TULEMUSED
PGC-1, mitokondriaalse dünaamika ja NLRP3 põletikuraja muutused neerukahjustuse ajal Esiteks uurisime PGC-1 ekspressiooni, mitokondriaalset dünaamikat ja NLRP3 rada TGF- 1-ga töödeldud RTEC-des . Nendes rakkudes vähendas TGF- 1-ravi Ppargc1a transkripti ja valgu taset (joonised 1A, B ja täiendav joonis 1A). Vastavalt sellele vähenesid oluliselt mitokondrite fusiooniga seotud geeni mitofusiini (Mfn) ja mitokondriaalset massi esindava mitokondriaalse transkriptsioonifaktori A (Tfam) mRNA ekspressioonitasemed, samas kui dünamiiniga seotud valgu 1 (Drp1), mitokondriaalse valgu mRNA ekspressioonitase. lõhustumisega seotud geeni tase suurenes võrreldes kontrolliga (joonis 1C). Lisaks aktiveeris ravi TGF- 1 NLRP3 põletikulise signaaliülekande, mida tõendab NLRP3 põletikurajaga seotud geenide ja valkude ekspressioonitaseme tõus (joonis 1D, E ja täiendav joonis 1B). ELISA abil mõõdetud TGF- 1--ga töödeldud rakulüsaatides suurenesid IL-1 ja IL-18, NLRP3 raja lõppproduktide kontsentratsioonid (joonis 1F). Lisaks suurenesid ka fibrootiliste markerite, sealhulgas fibronektiini ja kollageen 1 ekspressioonitasemed ning Bax/bcl-2 suhte ja lõhustatud kaspaasi-3 apoptootilise rakusurma indeks (joonis 1G, H ja täiendav joonis 1C). ). Need leiud olid sarnased adeniinist põhjustatud neerukahjustuse mudelis (joonis 2A-H ja täiendav joonis 1D-F). Seega toimuvad neerukahjustuse ajal olulised muutused PGC-1 ekspressioonis ja mitokondriaalses dünaamikas koos NLRP3 põletikuraja aktiveerumisega.
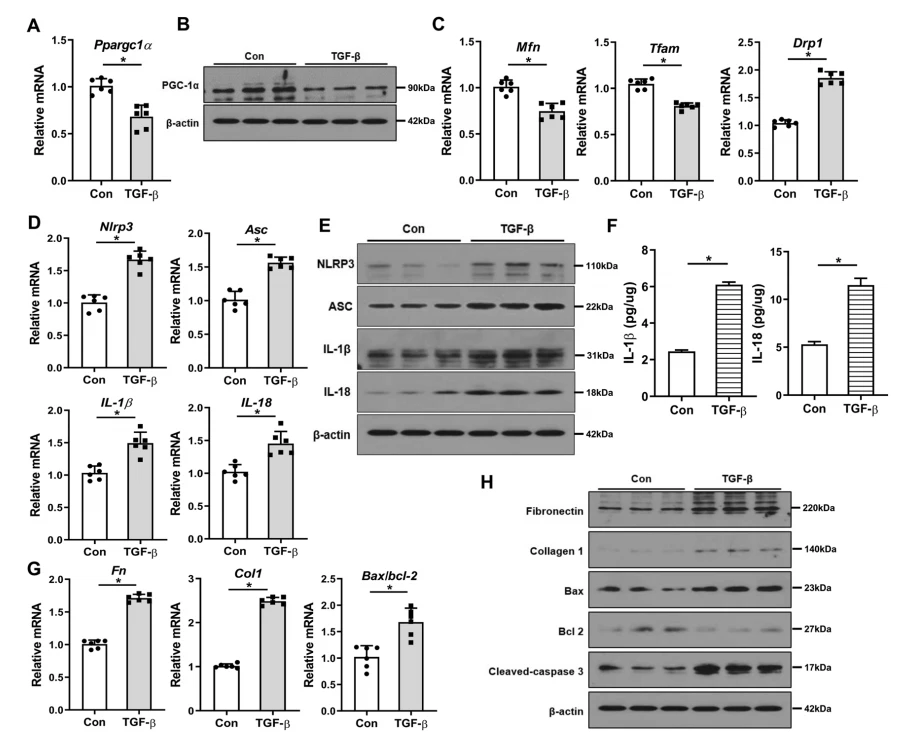
Joonis 1 Muutused PGC-1, mitokondriaalse dünaamika ja NLRP3 põletikurajas TGF- 1--ga töödeldud RTEC-des. PGC-1 mRNA ja B-valgu ekspressioonitasemed vähenesid TGF- 1--ga töödeldud RTEC-des. Mitokondriaalsete dünaamiliste geenide, sealhulgas Mfn, Tfam ja Drp1, C mRNA ekspressioon muudeti TGF{8}}-ga töödeldud RTEC-des. NLRP3 põletikuraja D mRNA ja E valgu ekspressioonitasemed tõusid TGF{{10}}-ga töödeldud RTEC-des. F ELISA abil hinnatud IL-1 ja IL-18 kontsentratsioonid suurenesid TGF- 1--ga töödeldud RTEC-des. TGF- 1--ga töödeldud RTEC-des tõusid fibrootiliste markerite, sealhulgas fibronektiini ja kollageen 1 ning Bax/bcl-2 ja lõhustatud kaspaasi-3 apoptootiliste rakusurma markerite G mRNA ja H valgu ekspressioonitasemed. Märkus: *P < 0,05 vs kontroll. PGC-1 peroksisomaalne proliferaator-koaktivaator-1; NLRP3 NOD-sarnaste retseptorite perekond, püriini domeeni sisaldav 3; ASC, apoptoosiga seotud täpitaoline valk, mis sisaldab kaspaasi värbamisdomeeni; RTEC neerutorukeste epiteelirakk; Mfn mitofusiin; Tfam mitokondriaalne transkriptsioonifaktor A; Drp1 dünamiiniga seotud valk 1; ELISA ensüümiga seotud immunosorbentanalüüs.
PGC-1 taastab kahjustatud mitokondriaalse dünaamika ja morfoloogia neerukahjustuse ajal
Järgmisena uurisime, kas PGC-1, mitokondriaalse biogeneesi põhiregulaator, võib neerukahjustuse ajal nõrgendada mitokondriaalset dünaamikat. Ppargc1 ekspressiooni moduleerimiseks kasutasime lisaks Ppargc1a plasmiidi, siRNA-d Ppargc1 vastu (siPGC-1) ja metformiini, PGC-1 kaudset aktivaatorit. Nagu oodatud, taastati kahjustatud mitokondriaalsed dünaamilised geenid Ppargc1 üleekspressiooniga. Seevastu Ppargc1a mahasurumine siPGC-1-ga vähendas Mfn ja Tfam ekspressiooni, kuid suurendas Drp1 ekspressiooni (joonised 3A–C ja täiendav joonis 2A, B). Neid tulemusi kinnitasid täiendavad katsed metformiiniga (joonis 3D-F ja täiendav joonis 2C, D). Sellised täiustused viisid mitokondriaalse funktsiooni taastumiseni. PGC-1 taastamine Ppargc1a plasmiidi ja metformiiniga parandas oluliselt TGF- 1-ga töödeldud RTEC-de vähenenud mitokondriaalset membraanipotentsiaali ja hapnikutarbimise määra (täiendav joonis 3A–D). Kooskõlas muutustega PGC-1-s vähenes fosfo-AMP-aktiveeritud proteiinkinaasi (p-AMPK) ekspressioon TGF- --ga töödeldud rakkudes, samas kui metformiinravi taastas need ekspressioonid (joonis 3F ja Täiendav joonis 2E). Kuid metformiin ei suurendanud PGC-1 mRNA ja valgu ekspressioonitaset RTEC-des koos Ppargc1a vaigistamisega. Need leiud viitavad sellele, et AMPK vahendab metformiini toimet ja PGC -1 on AMPK allavoolu efektor (täiendav joonis 2F, G, J). Metformiini kasulik mõju mitokondriaalsele dünaamikale tühistati ka Ppargc1a vaigistamisega (täiendav joonis 2H – J). In vivo ravi metformiiniga taastas ka Ppargc1 transkriptsioonitaseme ja muutis mitokondriaalse dünaamilise seotud geenide ekspressiooni adeniiniga toidetud ja UUO hiirtel (joonis 3G-I ja täiendav joonis 2K, L, 4A-E). Metformiini AMPK aktiivsust kinnitati ka in vitro adeniiniga toidetud mudelis (joonis 3I ja täiendav joonis 2M). Elektronmikroskoopia uuring kinnitas ka mitokondrite terviklikkuse kaotust adeniiniga toidetud ja UUO hiirte RTEC-des. Kuid metformiin parandas neid märkimisväärselt (joonis 3J ja täiendav joonis 4F). Need leiud viitavad sellele, et PGC-1 taastab neerukahjustuse ajal mitokondrites kahjustatud dünaamika, morfoloogia ja funktsioonid.
Mitokondriaalne kahjustus võib põhjustada neerurakkude surma ja fibroosi. Pärast TGF- 1-ravi täheldasime RTEC-des fibrootiliste markerite, sealhulgas fibronektiini ja kollageen 1 kõrgenenud ekspressioonitasemeid ning Bax/bcl-2 suhte ja lõhustatud kaspaasi-3 apoptootilise rakusurma indeksit. Neid rakusurma markerite suurenenud ekspressioone nõrgendas PGC-1 ja metformiini üleekspressioon, samas kui siPGC-1 võimendas neid (joonised 4A–D ja täiendav joonis 5A, B). Nende leidude kohaselt suurenesid fibrootiliste markerite ekspressioonitasemed ja apoptootilise rakusurma indeks märkimisväärselt adeniiniga toidetud ja UUO hiirtel. Seevastu metformiin muutis kõik need väljendid (joonis 4E, F ja täiendav joonis 5C, 6A, B). Massoni trikroomvärvimine kinnitas ka metformiini paranenud fibroosi (joonis 4G). Eelkõige muutis TGF-ga töödeldud RTEC-de suurendatud rakusurma markerid ja NLRP3 signaaliülekande ümber Z-Asp-2,6- diklorobensoüüloksümetüülketoon (Enzo Life Science, Farmingdale, NY, USA), pan-kaspaas. inhibiitor, mis viitab sellele, et TGF{19}}indutseeritud vigastuse vahendajaks on tõenäoliselt mitokondriaalne kahjustus ja varajane apoptoos (täiendav joonis 7A–D). Need leiud koos viitavad sellele, et PGC-1 aktiveerimine nõrgendab mitokondriaalseid kahjustusi ning vähendab rakusurma ja neerufibroosi.
PGC-1 moduleerib
NLRP3 põletikuline signaalirada Seejärel uurisime edasi seost PGC-1 ja NLRP3 põletikuliste radade vahel neerukahjustuse vahendamisel. Kui Ppargc1a plasmiidi transfektsiooniga indutseeriti PGC-1 üleekspressioon, vähenesid NLRP3, ASC, IL-1 ja IL-18 ekspressioonitasemed TGF- 1--ga töödeldud RTEC-des ( 5A, B ja täiendav joonis 8A). ELISA abil mõõdetud IL-1 ja IL-18 kontsentratsioonid TGF- 1--ga töödeldud rakulüsaatides vähenesid samuti pärast Ppargc1a plasmiidi transfektsiooni (joonis 5C). Ravi metformiiniga andis sarnase tulemuse (joonis 5D, E ja täiendav joonis 8B). Kuid Ppargc1a hävitamine põhjustas NLRP3 põletikurajaga seotud geenide ja valkude ekspressioonitaseme tõusu (joonis 5A, B ja täiendav joonis 8A). Lisaks vähendas metformiin samaaegselt NLRP3 põletikulise signaaliraja aktivatsiooni adeniiniga toidetud ja UUO hiirtel (joonis 5F, G ja täiendav joonis 6C, D, 8C). IL-1 ja IL-18 kontsentratsioonid RTEC-des ja neerukoe lüsaatides vähenesid ELISA-ga mõõdetud metformiinraviga oluliselt (joonis 5H).
Arvestades PGC-1 võimet reguleerida mitokondriaalset dünaamikat, testisime seejärel Drp1 rolli NLRP3 põletikulises aktivatsioonis. NLRP3 põletikulist signaaliülekannet vähendas oluliselt Drp1 katkestamine. Kuid RTEC-des, kus oli nii Ppargc1a kui ka Drp1 hävitamine, ei langenud NLRP3 põletikuliste komponentide ekspressioonitasemed võrreldes TGF{8}}-ga töödeldud rakkudega. Ppargc1a üleekspressiooni ja Drp1 löögiga RTEC-des oli NLRP3 põletikuline signaalimine vähem aktiveeritud (täiendav joonis 9A, B). Need leiud viitavad sellele, et Drp1 võib osaliselt vahendada NLRP3 põletikulist aktivatsiooni, kuid PGC -1 muud toimingud on seotud NLRP3 signaaliraja reguleerimisega.
Lisaks uurisime, kas NLRP3 põletikust saadav tagasisidesignaal on olemas. Selleks saime Nlrp3 knockout hiirtelt primaarse kultuuri abil RTEC-d. Nendes TGF- 1-ga töödeldud rakkudes aktiveerus NLRP3 signaalimine vähem kui vastavates rakkudes, mis viis mitokondriaalse dünaamika paranemiseni (täiendav joonis 10A–E). Sellest tulenevalt paranesid fibrootilised muutused ja rakusurm Nlrp3 puudumisel (täiendav joonis 10F, G). Need leiud viitavad võimalikule kahesuunalisele seosele mitokondriaalse kahjustuse ja NLRP3 signaalimise vahel.
NLRP3 oligomerisatsioon adaptervalguga ASC on põletikukompleksi moodustumise võtmeetapp. Seega uurisime, kas PGC- 1 mõjutab NLRP3 põletikukoostu. TGF- 1--ga töödeldud RTEC-des täheldati ASC seondumist NLRP3-ga. Seda oligomerisatsiooni vähendas oluliselt PGC-1 või metformiini üleekspressioon, samas kui seondumine taastati siPGC-1 abil (joonis 6A–C). Adeniiniga toidetud hiirtel kinnitati NLRP3 oligomeriseerumist ja aktiveerimist ASC seondumisega NLRP3-ga ja selle kaotas metformiin (joonis 6D, E).
Lõpuks uurisime täiendavalt mitokondriaalset sisu ja sellega kaasnevaid muutusi NLRP3 ekspressioonis. Konfokaalne mikroskoopia uuring näitas, et MitoTracker Redi intensiivsus ja NLRP3 ekspressioon muutusid RTEC-des koos PGC-ga või ilma -1. TGF- 1 vähendas MitoTrackeri värvimise intensiivsust ja need taastati PGC-1 üleekspressiooni ja metformiini toimel. Vastupidi, NLRP3 suurenenud ekspressioon TGF- 1--ga töödeldud RTEC-des vähenes PGC-1 üleekspressiooni ja metformiini tõttu. Kuid siPGC-1 muutis need leiud ümber (joonis 7). Kokkuvõttes näitavad need leiud, et NLRP3 põletikukompleksi kokkupanek indutseeriti neerukahjustuse ajal ja selle raja aktiveerimist nõrgestas PGC-1.
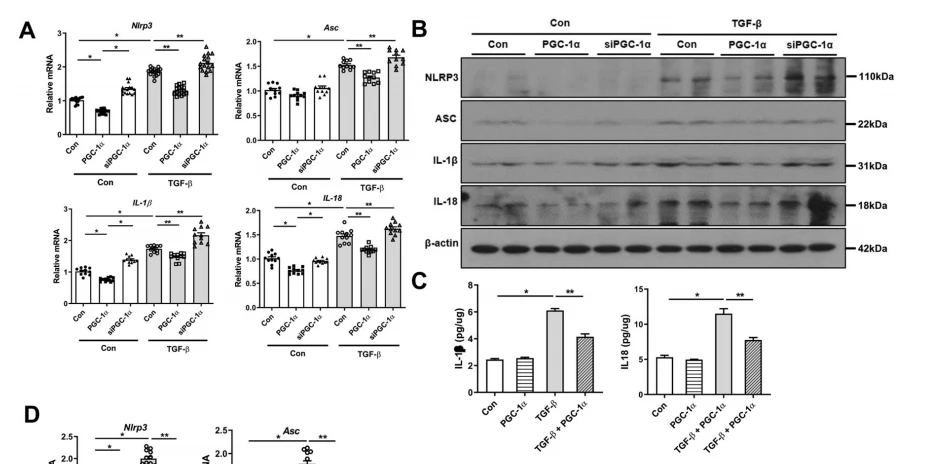
Joonis fig 5 PGC-1 moduleerib NLRP3 põletikulist signaalirada. NLRP3 põletikuraja mRNA ja B valgu ekspressioonitasemed vähenesid TGF- 1--ga töödeldud RTEC-des Ppargc1a plasmiidi transfektsiooniga, samas kui siPGC-1 suurenes. C ELISA abil hinnatud IL- 1 ja IL-18 kontsentratsioonid vähenesid Ppargc1a üleekspressiooniga TGF- 1--ga töödeldud RTEC-des. NLRP3 põletikuraja D mRNA ja E valgu ekspressioonitasemed nõrgenesid TGF{12}}-ga töödeldud RTEC-des metformiiniga. ELISA abil hinnatud NLRP3 põletikuraja F mRNA ja G valgu ekspressioonitasemed ning IL-1 ja IL-18 H kontsentratsioonid nõrgenesid metformiiniga adeniiniga toidetud hiirtel. Märkus: *P < 0.05 vs kontroll; **P < 0,05 vs. TGF{21}}-ga töödeldud RTEC-d või adeniiniga toidetud hiired. PGC-1 peroksisomaalne proliferaator-koaktivaator-1; NLRP3 NOD-sarnaste retseptorite perekond, püriini domeeni sisaldav 3; ASC apoptoosiga seotud täpitaoline valk, mis sisaldab kaspaasi värbamisdomeeni; RTEC neerutorukeste epiteelirakk; ELISA ensüümiga seotud immunosorbentanalüüs; Ade adeniin; Metformiiniga tutvunud.

Joonis 6 PGC-1 moduleerib NLRP3 põletikulise oligomerisatsiooni neerukahjustuse ajal. DSS-vahendatud ristsidumisega testitud A-C ASC oligomeerseid struktuure täheldati TGF- 1--ga töödeldud RTEC-des, mida nõrgestas Ppargc1a ja metformiini üleekspressioon, samas kui siPGC-1 süvendas. D, E ASC oligomeerseid struktuure täheldati adeniiniga toidetud hiirtel, mida metformiin nõrgendas. Märkus: *P < 0.05 vs kontroll; **P < 0,05 vs. TGF{13}}töödeldud RTEC-d või adeniiniga toidetud hiired. PGC-1 peroksisomaalne proliferaator-koaktivaator-1; NLRP3 NOD-sarnaste retseptorite perekond, püriini domeeni sisaldav 3; ASC apoptoosiga seotud täpitaoline valk, mis sisaldab kaspaasi värbamisdomeeni; DSS disuktsiinimidüülsuberaat; RTEC neerutorukeste epiteelirakk; Ade adeniin; Metformiiniga tutvunud.
PGC-1 juhib mtDNA, oksüdatiivse stressi ja TNFAIP3 vabanemist, et reguleerida NLRP3 põletikku
PGC-1 ja NLRP3 põletikuraja vahelise mehaanilise seose edasiseks selgitamiseks neerukahjustuse korral uurisime esmalt mtDNA muutusi rakukahjustuse korral, mida tuntakse NLRP3 põletikulise aktivatsiooni käivitajana. MtDNA koopiate arv vähenes mitokondriaalses fraktsioonis ja suurenes tsütosoolfraktsioonis pärast TGF- 1-ravi, mis viitab sellele, et mtDNA vabanes mitokondritest tsütosooli. Nimelt taastati need muutused pärast Ppargc1a üleekspressiooni (joonis 8A).
Seejärel uurisime oksüdatiivset stressi, mis on NLRP3 põletiku positiivne regulaator. TGF- 1--ga töödeldud RTEC-des oli oksüdatiivne stress võrreldes kontrollidega märgatavalt väljendunud, mida tõendasid suurenenud MitoSOX-i värvimise intensiivsus ja suurenenud MDA tase. Ravi Ppargc1a plasmiidi ja metformiiniga vähendas seda mitokondriaalse ROS-i ületootmist. Vastupidiselt, Ppargc1a knockdown suurendas veelgi oksüdatiivse stressi taset TGF- 1--ga töödeldud RTEC-des (joonis 8B–D). Sarnaselt in vitro uuringu tulemustele tõusid MDA tasemed märkimisväärselt adeniiniga toidetud ja UUO hiirtel. Suurenenud oksüdatiivset stressi vähendas metformiin (joonis 8E ja täiendav joonis 6E).
Lõpuks uurisime täiendavalt TNFAIP3, mida reguleerib PGC-1 ja mida tuntakse ka kui NLRP3 põletikulist negatiivset regulaatorit. TGF- 1 vähendas Tnfaip3 transkriptsiooni taset ja Tnfaip3 vähenenud ekspressioon taastati PGC-1 taastamisega. Seevastu Ppargc1a knock-downi tulemuseks oli Tnfaip3 ekspressiooni edasine vähenemine (joonis 8F, G ja täiendav joonis 8D, E). Veelgi enam, adeniiniga toidetud ja UUO hiirtel vähenes TNFAIP3 ekspressioon ja metformiin taastas selle ekspressiooni (joonis 8H ja täiendav joonis 6F, 8F). Kokkuvõttes näitavad need leiud, et PGC-1 võib reguleerida NLRP3 põletikku mtDNA vabanemise, mitokondriaalse ROS/oksüdatiivse stressi ja TNFAIP3 moduleerimise kaudu.
Wecistanche'i tugiteenus - Hiina suurim tsistanšeksportija:
E-post:wallence.suen@wecistanche.com
Whatsapp/Tel:+86 15292862950
Lisateabe saamiseks ostke:
https://www.xjcistanche.com/cistanche-shop


