

Nukleiinhappepõhised vaktsiiniplatvormid koroonaviirushaiguse 19 (COVID-19) vastu
Aug 11, 2023
Abstraktne
2019. aasta koroonaviiruse haiguse (COVID-19) pandeemia on nakatanud 673 010 496 patsienti ja põhjustanud tänaseni kogu maailmas 6 854 959 juhtumi surma. Oluliselt erinevate COVID{8}} vaktsiiniplatvormide väljatöötamiseks on tehtud tohutuid jõupingutusi. Nukleiinhappepõhised vaktsiinid, mis koosnevad mRNA- ja DNA-vaktsiinidest (kolmanda põlvkonna vaktsiinid), on olnud paljutõotavad kiire ja mugava tootmise ning COVID-i vastaste immuunreaktsioonide tõhusa esilekutsumise osas-19. Mitmed DNA-põhised (ZyCoV-D, INO-4800, AG0302-COVID19 ja GX-19N) ja mRNA-põhised (BNT162b2, mRNA-1273 ja ARCoV) COVID{22}} ennetamiseks on kasutatud heakskiidetud vaktsiiniplatvorme. mRNA vaktsiinid on kõigi COVID-19 ennetamise platvormide esirinnas. Nendel vaktsiinidel on aga madalam stabiilsus, samas kui immuunvastuste stimuleerimiseks on vaja suuremate annustega DNA vaktsiine. Nukleiinhappepõhiste vaktsiinide intratsellulaarne manustamine ja nende kõrvaltoimed vajavad täiendavaid uuringuid. Arvestades COVID{26}} murettekitavate variantide taastekkimist, on vaktsiinide ümberhindamine ja polüvalentsete vaktsiinide ehk pankoronaviiruse strateegiate väljatöötamine nakkuste tõhusaks ennetamiseks hädavajalik.
Tistanche toidulisandi eelised - kuidas tugevdada immuunsüsteemi
Cistanche Enhance Immunity toodete vaatamiseks klõpsake siin
【Küsi lisa】 E-post:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Märksõnad
Koronaviirushaigus 19 · Nukleiinhappepõhised vaktsiinid · Immuunsus · Kaitse
Taust
2019. aasta lõpus tekkis Hiinas Wuhanis uudne beeta-koroonaviirus, mis levis kiiresti kogu maailmas. 2019. aasta koroonaviirushaigusel (COVID-19) on suur potentsiaal pandeemiaks, kuna sellel on kõrge nakkavuse tase ja kõrge suremus kogu maailmas (Sharma et al. 2020; Su jt 2020; Wibawa 2021). Seetõttu on haiguse vastu tõhusate vaktsiinide või ravimeetodite väljatöötamiseks vaja teha suuri jõupingutusi (Su et al. 2020). COVID-19 haiguse sümptomid on erinevad, sealhulgas kerged fu-sarnased sümptomid, kopsupõletik, ägeda respiratoorse distressi sündroom (ARDS) ja surmaga lõppev tulemus. Vähktõve, diabeedi, südame-veresoonkonna haigustega patsientidel, vanematel täiskasvanutel ja isegi geneetilise eelsoodumusega inimestel on suurim risk COVID-19 raskusastmeks (Sharma et al. 2020; Su jt 2020; Wibawa 2021; Vakil jt. 2022). Maailma Terviseorganisatsiooni (WHO) soovituste kohaselt on maskide kandmine, viirusevastaste ravimite kasutamine, sotsiaalne distantseerumine ja vaktsineerimisprotseduuride järgimine COVID{14}} pandeemia kontrolli all hoidmisel kogu maailmas üliolulised (Sharma et al. 2020). Teaduslikud jõupingutused invasiivsete patogeenide vastu tõhusate vaktsiinide väljatöötamiseks pärinevad palju aastaid tagasi (Deb et al. 2020; Zhang jt 2020; Wibawa 2021). Need vaktsiiniplatvormid on loodud ka patogeensete bakterite vastu (Farhani et al. 2019; Jafari ja Mahmoodi 2021). Sellega seoses peetakse tõhusa, kaitsva ja ohutu vaktsiini väljatöötamist keskseks ennetusmeetodiks raske ägeda respiratoorse sündroomi koroonaviiruse 2 (SARS-CoV-2) leviku tõkestamiseks (Moore ja Klasse 2020). Seetõttu võistlesid erinevad farmaatsiaettevõtted ja uurimisrühmad üle maailma, et pakkuda rahvusvahelises kogukonnas kasutamiseks ohutut ja tõhusat vaktsiini COVID-i vastu{25}}. Nende jõupingutuste käigus on välja töötatud teisi vaktsiiniplatvorme, et osaleda prekliinilistes ja kliinilistes uuringutes ning mõned neist on heaks kiidetud (Chen et al. 2021), sealhulgas traditsioonilised vaktsiinid, nagu elus- või inaktiveeritud, subühiku- ja nukleiinhappepõhised vaktsiinid kui järgmise põlvkonna vaktsiinid. (Moore ja Klasse 2020). Teaduslike tõendite põhjal stimuleerivad nõrgestatud elusvaktsiinid kaasasündinud, rakulisi ja humoraalseid immuunvastuseid, kutsudes esile pikaajalise immuunsusega Toll-like retseptorite (TLR-id) ja võivad tekitada ülitundlikkust. Nende vaktsiinide peamine puudus on nende kulukas ohutuse ja tõhususe hindamine. Inaktiveeritud viirusvaktsiinid kutsuvad halvasti esile rakulise immuunvastuse, mis vähendab nende tõhusust. 2020. aasta aprillis valmistas Sinovac and Wuhan Institute of Biological Products (Sinopharm) inaktiveeritud COVID-19 vaktsiini (Moore ja Klasse 2020; Su et al. 2020). Subühikvaktsiinid on ohutud, mõningate defektidega, sealhulgas madal immunogeensus, revaktsineerimis- või adjuvandivajadus ja kõrge hind (Koirala et al. 2020; Su et al. 2020). Nukleiinhappepõhised vaktsiinid on välja töötatud järjestusteabe põhjal. Nende hulka kuuluvad antigeenide DNA või mRNA järjestused, mis stimuleerivad erinevates annustes tugevalt rakulist ja humoraalset immuunvastust. Tänu nende eelistele, nagu kiire tootmine ja kõige varasemad COVID-19 vaktsiinid kliinilistes uuringutes, on DNA-põhiste vaktsiinide märgatavaks eeliseks nende stabiilsus erinevates säilitustingimustes (Silveira et al. 2020; van Riel ja de Wit 2020). RNA-põhised vaktsiinid said suuremat tähelepanu sellistelt farmaatsiaettevõtetelt nagu Pfizer/Biotech ja Moderna. Erinevalt DNA vaktsiinidest stimuleerivad nad tõhusat humoraalset immuunvastust TLR ligandidena ilma adjuvandita ja nende järjestust muudetakse, et välistada mRNA lagunemine (Moore ja Klasse 2020; van Riel ja de Wit 2020; Soiza et al. 2021). Selle ülevaate eesmärk oli hinnata hiljutisi arenguid nukleiinhappepõhiste vaktsiinide, sealhulgas COVID-i vastaste mRNA- ja DNA-vaktsiinide vallas-19.
Põhitekst
Koroonaviiruse nakkuse ja immuunvastuse molekulaarne mehhanism

cistanche taime suurendav immuunsüsteem
COVID-i nagu on kujutatud joonisel 1a. Inimese SARS-CoV hõlmab ümbrise osana spike (S) glükoproteiini. Viiruse inkorporeerimine peremeesrakkudesse toimub spike-valgu abil, mis koosneb S1 ja S2 subühikutest. Nad mängivad olulist rolli kinnitumisel peremeesraku retseptoritega, mida tuntakse angiotensiini konverteeriva ensüümina II (ACE2) infektsiooni initsieerimiseks (joonis 1b). ACE2-ga kõrge afiinsusega seonduva S1 domeeni keskpiirkond on retseptorit siduv domeen (RBD). Sellega seoses on inimese rakuinfektsiooni initsieerimiseks vajalik RBD ja ACE2 interaktsioon (He et al. 2020). Lisaks on S-valgu kärpimine hädavajalik viiruse peremeesrakkudesse sisenemiseks; pärast RBD piirkonna kinnitumist ACE2-ga lõikab peremeesproteaas, mida tuntakse kui TM proteaas seriin 2 (TMPRSS2), S-valgu S1 ja S2 domeenideks, mis viib S2 domeeni sulandumiseni peremeesrakuga (Huang et al. 2020). Kuigi tugevad immuunvastused on tõhusad COVID-19, ülitundlikkuse ja tsütokiinitormi (peamiselt interleukiin-6-, IL-1b, GM-CSF-, interferoon-/IFN-, nekroosifaktor / TNF-, IL-10-, IL-2- ja IL- 7- juhitud vastused) peavad olema keelatud (Chowdhury et al. 2020). Pärast viiruse kinnitumist (spike-ACE2 interaktsioon) ja sisenemist hingamisteede rakkudesse esitlevad fagotsüütilised alveolaarsed makrofaagid ja dendriitrakud (DC-d) T-rakkudele viiruse antigeene ning aktiveerivad T-CD4+(abistaja-T-rakud) ja T-CD-d{{37 }}(tsütotoksiline T-rakk). Seejärel vabanevad põletikuvastased tsütokiinid nagu IL6, IL12, TNF ja IFN jne, et viirusega kokku puutuda. Tsütokiinide tormi põhjustav kõrge tsütokiinitootmise tase põhjustab aga kopsukahjustusi (Hosseini et al. 2020). Teaduslike tõendite kohaselt on abistaja-T-rakud vajalikud viirusnakkuse elimineerimiseks, B-rakkude indutseerimiseks antikehade tootmiseks ja tsütotoksiliste T-rakkude stimuleerimiseks (Sharma et al. 2020). COVID-19 antigeensed sihtmärgid Ohutu ja kaitsva vaktsiini väljatöötamisel patogeense organismi vastu on oluline kindlaks teha parimad immunogeensed sihtmärgid (Lu et al. 2020b). Potentsiaalsete antigeensete sihtmärkide vastuvõtmine on kriitiline, et provotseerida T-rakkude ja B-rakkude epitoobid rakulise ja humoraalse immuunsuse nõuetekohaseks esilekutsumiseks (Rueckert ja Guzmán 2012). Viiruse S-valk interakteerub peremeesrakkudega olulise ligandina RBD domeeni kaudu. RBD domeen võib indutseerida neutraliseerivate antikehade tootmist ja T-raku immuunvastust COVID-i vastu-19. Samuti on kinnitatud S-valgu immunogeensus (Pushparajah et al. 2021). N-valgul on võrreldes teiste viirusvalkudega väike ja väga konserveerunud järjestus. N-valk ekspresseerub kõrgelt viirusinfektsiooni ajal, millega kaasneb patsientide seas märkimisväärne humoraalne immuunvastus COVID-19 vastu. Lisaks võib N-valgu vastaste rakuliste reaktsioonide tõttu pidada seda vaktsiini kavandamisel sobivaks kandidaatantigeeniks (Dutta et al. 2020). Lisaks stimuleerivad M-valk ja E-valk T-CD{50}}epitoope (Wang et al. 2005; Abdelmageed jt 2020; Dong jt 2020). Tugeva immuunvastuse esilekutsumine S-valgu vastu on määrav ja vajalik (Buchholz et al. 2004). S-valk sisaldab kõige immunogeensemaid T-raku ja B-raku epitoope, mida tuntakse COVID-vastase vaktsiini väljatöötamise eelistatud sihtmärkidena-19. Seda on kasutatud kõigis väljatöötatud mRNA platvormi vaktsiinides, nagu Pfizer/BioNtech ja Moderna vaktsiinid.

Joonis 1a SARS-CoV-2 virioni struktuur; COVID-19 viiruse peamised pinnavalgud on Spike (S) glükoproteiin, Membran (M) ja Envelope (E) valgud. S-valk on peamine vaktsiin ja terapeutiline sihtmärk, mis interakteerub angiotensiini konverteeriva ensüümi II (ACE2) retseptoriga infektsiooni initsieerimiseks. b Spike-valgu domeenid; S-valk sisaldab S1 (NTD ehk mittetransleeritud domeen ja RBD ehk retseptorit siduv domeen) ja S2 subühikuid
Nukleiinhappepõhiste ravimite ajalugu
Oligonukleotiidid viidi kliinilistesse uuringutesse rohkem kui 30 aastat tagasi. Nukleiinhappepõhiste ravimeetodite kasutamise ajalugu ulatub aastasse 1977, mil Paterson et al. kasutasid nukleiinhappeid geeniekspressiooni häälestamiseks (Paterson et al. 1977). Praegu on neid rohkem arvestatud. Nukleiinhappepõhised ravimid jagunevad erinevatesse kategooriatesse, sealhulgas antisenss-vormid, ribosüümid, mRNA ja DNA-põhised vaktsiinid (Sharma et al. 2014). Sünteetiline oligodeoksünukleotiid inhibeeris Rous Sarcoma Virus (RSV) replikatsiooni, mis oli komplementaarne RSV mRNA-ga ja oli tuntud kui antisenss (Zamecnik ja Stephenson 1978). Esimene antisenss viidi kliinikusse tsütomegaloviiruse (CMV) vastu (Mulamba et al. 1998). Väikesel segaval RNA-l (siRNA) on potentsiaal inhibeerida geeniekspressiooni ja esimest korda teatati sellest 1998. aastal. Teine väikeste mittekodeerivate RNA-de rühm hõlmab mikroRNA-sid (miRNA-sid), millel on geeniekspressiooni reguleerimisel asendamatu roll. funktsioonid on sarnased siRNA-ga ja terapeutiline potentsiaal (Usman ja Blatt 2000; Sharma et al. 2014). Nagu mainitud, toimib RNA molekulide ribosüümiklass ensüümidena, mis on suunatud transkriptsioonile. Ribosüümid osalesid vähi ja mõnede viirusnakkuste, näiteks inimese immuunpuudulikkuse viiruse (HIV) vastastes kliinilistes uuringutes (Usman ja Blatt 2000; Abera et al. 2012). Lisaks mRNA- ja DNA-põhistele vaktsiinidele klassifitseeritakse need 1990. aastal kasutusele võetud nukleiinhappepõhiste ravimite hulka ja neile on COVID-i vastu võitlemise vaktsiinide väljatöötamisel rohkem tähelepanu pööratud-19 (Le et al. 2020; Zhang et al. . 2020). Nende vaktsiinirühmade peamisteks eelisteks on nende kiire tootmine ja kõrge spetsiifilisus vastavate sihtantigeenide suhtes (Le et al. 2020).
cistanche tubulosa - parandab immuunsüsteemi
mRNA-põhised vaktsiinid
MRNA molekulide esialgne toimetamine peremeesrakkudesse hõlmas mRNA transfektsiooni fibroblastirakkudesse, kasutades katioonset lipiidi (Park et al. 2021). mRNA vaktsiinid hõlmavad patogeeni antigeene mRNA, mis toodavad inimese rakkudes antigeenseid valke. MRNA vaktsiinide mitmed eelised hõlmavad lihtsat tootmisprotsessi, tõhusat ja kaitsvat immuunsust, mugavat manipuleerimist ja industrialiseerimist ning paindlikkust COVID-19 variantidele reageerimisel (Kaufman et al. 2016; Fang et al. 2022). Mõned lähenemisviisid, nagu 5'-cap ja Kozak järjestuste lisamine, rakendatakse 3'-polü-A järjestuste ja mRNA nukleosiidide modifitseerimise abil (Borah et al. 2021). MRNA vaktsiinid transleeritakse peremeesorganismi tsütosooliks. Seetõttu puudub peremeesgenoomide sisestamise oht, mida tuntakse nende peamise eelisena. Sellega seoses pöörati hiljuti rohkem tähelepanu mRNA-põhistele vaktsiinidele kui vähi ja nakkushaiguste ohutule ennetavale lähenemisviisile (Kaur ja Gupta 2020). MRNA vaktsiinide esmane toimemehhanism on kujutatud joonisel 2.
DNA-põhised vaktsiinid
DNA vaktsiinid sisaldavad mitmeid viiruse antigeenseid peptiide kodeerivaid geene, mida ekspresseerivad plasmiidvektorid ja edastatakse rakkudesse elektroporatsiooni (EP) kaudu. Võrreldes teiste vaktsiiniplatvormidega pakuvad DNA vaktsiinid paindlikku ja kiiret platvormi vaktsiinide väljatöötamiseks, muutes selle põnevaks tehnoloogiaks selliste arenevate epideemiate vastu võitlemiseks nagu COVID{0}}. Peale selle toimub DNA vaktsiini antigeeni tootmine sihtrakkudes, mis aitab kokku võtta viiruse antigeeni loomuliku konformatsiooni ja translatsioonijärgse modifikatsiooni. DNA vaktsiinide peamiseks puuduseks on nende piiratud immunogeensus. Seetõttu on oluline kaaluda selliseid strateegiaid nagu adjuvant või esmase võimendusrežiimi kasutamine, mis võib suurendada DNA vaktsiini potentsiaali. Samuti on nukleiinhappe integreerimine peremees-DNA-sse veel üks bioohutuse probleem, mille tulemuseks on onkogenees ja mutagenees (Rauch et al. 2018). Kuigi varasemate uuringute kohaselt on DNA vaktsiini sisestamise oht tühine, soovitavad WHO ja FDA integreerimiseks rakendada DNA vaktsiini ohutust (Wang et al. 2004; Schalk jt 2006). DNA vaktsiinid kannavad koronaviiruse geenid inimese rakkudesse. Vaktsineerimise põhimõte sõltub DNA kohaletoimetamisest rakutuuma, nii et antigeeni transkriptsioon algab ja sellele järgneb translatsioon. DNA vaktsiinid kasutavad vektoritena tavaliselt plasmiide. Vaktsiini manustamisviisi alusel käsitletakse nii müotsüüte kui ka keratinotsüüte. Süstekoha lähedal olevaid antigeeni esitlevaid rakke võib aga ka otse transfekteerida, kasutades DNA vaktsiine. Sellistel juhtudel esindab ristpraimimisprotsess antigeene, kasutades mõlemat peamist histo-sobivuse kompleksi (MHC-I/II) molekuli (Hobernik ja Bros 2018). Loodud antigeenid vabastatakse apoptootiliste kehade või eksosoomide abil, mille tulemusel tunnevad need ära antigeeni esitlevad rakud, mis omakorda kutsuvad esile rakulisi ja humoraalseid immuunvastuseid. Tugeva immuunvastuse tekitamiseks kasutatakse erinevaid kohaletoimetamisstrateegiaid (Donnelly et al. 2005; Li ja Petrovsky 2016; Strizova jt 2021). Mis puudutab immuunregulatsiooni COVID-19 nakkuse ajal, siis on selgunud, et patsiendid, kellel on risk perikardi efusiooni tekkeks vale prognoosiga, näitavad CD3+CD8+ T-rakkude suurenemist ja CD{{ 18}}HLA-DR ja T regulatoorsed (Treg) rakud (Duerr et al. 2020). Need tulemused näitavad, et tõsine infektsioon tekib tasakaalustamata immuunvastuse tõttu, mis süvendab haigusseisundeid (Tay et al. 2020). COVID-19 vaktsiini edenemise eesmärk oli välja töötada tõhus ja sobiv immuunvastus (sealhulgas mõlemad käed), ilma et see oleks tasakaalust väljas (Hobernik ja Bros 2018). Kuigi DNA vaktsiinidega läbiviidud kliinilised inimkatsed käivitasid täielikud vastused, on need vastused sageli ebapiisavad, et saada vastuvõetavaid kliinilisi eeliseid. Lisaks võivad plasmiidse DNA põhikomponendid, näiteks metüleerimata CpG järjestused, põhjustada kaasasündinud immuunvastuste aktiveerumist, suurendades adaptiivset immuunvastust ekspresseeritud antigeenide vastu. Seega on DNA vaktsiinid veterinaarmeditsiinis rohkem rakendatavad (Coban jt 2013; Silveira jt 2017; Hobernik ja Bros 2018). Selle puuduse tõttu keskenduvad mõned uurimissuunad DNA vaktsiinide optimeerimisele ja kohaletoimetamisele, sealhulgas koodonite optimeerimisele, promootori disainile, molekulaarsetele adjuvanditele, EP pealekandmisele, esmase võimendusvaktsineerimisele või täiustatud vaktsiinide kavandamise "omika" meetoditele (Li et al. 2012; Silveira jt 2020). Joonis 3 illustreerib DNA vaktsiinimehhanismide peamisi etappe tõhusates immuunvastustes.

Joonis fig 2 mRNA vaktsiini preparaat, manustamine ja immuunprovotseerimise mehhanismid: lipiidi nanoosakesega (LNP) mRNA preparaat säilitab ja suurendab järjestuse stabiilsust. b MRNA-LNP vaktsiini soolalahust manustatakse intramuskulaarselt. c LNP-d sisaldav mRNA transfekteeritakse endotsütoosi kaudu antigeeni esitlevatesse rakkudesse (APC). mRNA vabaneb tsütoplasmas ja transleeritakse viirusvalkudeks, seejärel lüüsitakse proteasoomi poolt ja seonduvad peamise histo-sobivuskompleksiga I (MHC-I) endoplasmaatilise retikulumi pinnale ja esitatakse T-tsütotoksilistele (Tc) rakkudele.
mRNA- ja DNA-põhiste vaktsiinide potentsiaal
MRNA-taseme vaktsiinistruktuur sisaldab elemente stabiilsuse ja valgu ekspressiooni parandamiseks, sealhulgas 3' UTR, kodeeriv järjestus, 5'UTR, 5' kork ja polü (A) saba (Liu 2019). Viirus- või eukarüootsetest geenidest pärineva kodeeriva järjestusega külgnevad 5'- ja 3'-UTR-elemendid suurendavad mRNA struktuurset stabiilsust ja translatsiooni, mis on vaktsiinide jaoks olulised tegurid (Ross ja Sullivan 1985; Holtkamp et al. 2006). Valkude tõhusaks translatsiooniks mRNA-st on vaja 5'-korki struktuuri (Martin et al. 1975; Ross ja Sullivan 1985). mRNA polü (A) sabal on ka reguleeriv roll mRNA stabiilsuses ja translatsioonis (Holtkamp et al. 2006). Samuti on koodonite kasutamisel oluline roll valkude translatsioonis. Seoses sellega, et suurendada valgu translatsiooni mRNA-st, asendatakse haruldased koodonid kasutatud sünonüümsete koodonitega, millel on tsütosoolis rohkesti tRNA-d (Stepinski et al. 2001). Teine lähenemisviis järjestuse optimeerimiseks on G: C sisu rikastamine. Viimastel aastatel on mitmed meetodid välja töötanud tõhusad ja ohutud DNA kandidaatvaktsiinid. DNA-põhises vaktsiiniplatvormis rakendatakse bakteritest pärinevaid plasmiidvektoreid, et ekspresseerida soovitud antigeene peremeesrakkudes. Bakteriaalsed plasmiidid tuleb sisestada eukarüootsetesse rakkudesse ja ümber paigutada tuuma. Seejärel DNA transkripteeritakse ja transleeritakse võõrgeenidest vastavalt peremeesraku tuumas ja tsütoplasmas. Seetõttu on tõhusa DNA vaktsiini saavutamiseks hädavajalik sobiva plasmiidi kujundamine, millel on kõrge transfektsiooni efektiivsus ja valgu ekspressioon (Malone et al. 1989). Eukarüootse piirkonna järjestus (DNA vaktsiinide plasmiidides), sisestatud geenist ülesvoolu, koosneb promootorist ja polü-A-signaalist (polyA) (AAU AAA), mis asuvad antigeense järjestuse 3'-otstes (Shan et al. . 2011). Promootorid on kriitilised elemendid, mida on vaja DNA vaktsiini plasmiidides, et kutsuda esile soovitud antigeenide kõrged ekspressioonitasemed peremeesrakkudes (Becker et al. 2008) ja viia sisestatud geenist mRNA transkriptsioon. DNA vaktsiinides kõige sagedamini kasutatav promootor hõlmab inimese tsütomegaloviiruse (CMV) promootorit. PolüA järjestuse signaal põhjustab mRNA stabiilsuse ja ülekande ning eukarüootse geeni ekspressiooni tõhusalt. Teine kriitiline element on Kozaki järjestus (ACCATGG), millel on oluline roll eukarüootse ribosoomi translatsioonis. Samuti on vajalik ühe või kahe stop-koodoni järjestuse lisamine, et vältida sisestatud geeni vale translatsiooni peremeesrakus (Becker et al. 2008; Williams 2013). DNA ja mRNA vaktsiiniplatvormide võrdlus Kuigi DNA ja mRNA vaktsiine on arendatud alates 1990. aastatest ning viimastel aastatel on välja töötatud ja litsentsitud erinevaid veterinaarseid DNA vaktsiine, on märkimisväärne entusiasm pöördunud mRNA poole. Mõlemad vajavad jõupingutusi oma antigeensuse, stabiilsuse ja tõhususe suurendamiseks, manipuleerides plasmiidse DNA ja mRNA sirgjooneliselt või lisades immunomodulaatoreid või adjuvante ning preparaate ja manustamissüsteeme (Liu 2019). mRNA stabiilsuse kestus on madalam kui plasmiidse DNA oma. On välja selgitatud, et DNA vaktsiinid genereerivad kodeeritud valku kiiresti, olles suuremas koguses kui mRNA vaktsiinid tänu suuremale plasmiidse DNA stabiilsusele. On leitud, et plasmiidne DNA püsib lihastes kuni 6 kuud integreerimata režiimis (Ledwith et al. 2000). Kuigi DNA ja mRNA vaktsiinid peaksid olema lemmikvalgu ekspressioonisüsteemid, pole ükski neist immunoloogiliselt inertne. Samuti stimuleerivad DNA plasmiidid ja mRNA kaasasündinud immuunsust (Campbell 2017). DNA-l ja mRNA-l põhinev vaktsiinitehnoloogia ei pruugi olla täiesti üldine. mRNA on keerulisem kui plasmiidne DNA, kuna kohaletoimetamiseks on vaja modifitseeritud nukleoside ja preparaate, stabiilsust ja vajadust kontrollida mRNA sisemist immunostimuleerivat aktiivsust. Sellest hoolimata toob see kasu tootmisele, mis väldib nõudlust iga rakulise või loomse toote järele. Lubadus on, et kliinilised saavutused on teostatavad pärast seda, kui plasmiidse DNA ja mRNA vaktsiiniga seotud väljakutsed on lahendatud, eriti haiguste ennetamiseks ja raviks täiustatud tehnoloogiate abil (Liu 2019).

Joonis 3 COVID-19 DNA vaktsiini ekspressiooniprotsess antigeeni esitlevatesse rakkudesse (dendriitrakud või DC-d). Plasmiidne DNA siseneb DC tuuma ja ekspresseerib antigeene in vivo (1) Seejärel esitatakse antigeenid T-rakkudele (T-raku retseptorid või TCR-id) nii MHC-I kui ka MHC-II molekulide kaudu. Antigeeni esitlemine toimub DC CD80/86 molekulide ja CD8+T-raku CD28 molekulide kaudu koos MHC-I-TCR-iga ning samuti DC CD40 ja CD4+T-raku CD40L kaudu koos MHC-I-TCR-iga. MHC-II-TCR interaktsioonid (2a, 3 ja 4) CD8+T-rakkude ja tsütokiinide vabanemise aktiveerimine ja proliferatsioon põhjustab tõhusaid immuunvastuseid, nagu makrofaagide aktiveerimine (2b) Lisaks aktiveeritakse CD 4+T-rakud pärast DC-dega seondumist ja tsütokiinide mõjusid on seotud B-rakkude aktivatsiooni, proliferatsiooni ja antikehade sekretsiooniga (5)
Edusammud DNA ja mRNA vaktsiini kohaletoimetamisel
Võõra DNA ja RNA omastamine eukarüootsete rakkude poolt ei ole viirusvektoritega võrreldes tõhus. Rakkude omastamisvõime suurendamiseks on loodud palju füüsilise kohaletoimetamise meetodeid (Mellott et al. 2013). Geenitransfektsiooni füüsikalised meetodid hõlmavad kohaletoimetamissüsteeme, mis edastavad geneetilist materjali mehaaniliste protseduuride kaudu, sealhulgas EP ja projektorseadmed (Gulce-Iz ja Saglam-Metiner 2019). Biojektori seadmed kasutavad CO2 rõhku ravimite transportimiseks IM (intramuskulaarne), ID (intradermaalne) ja ka SC (subkutaanne) manustamise kaudu ilma nõela vajaduseta (Jorritsma et al. 2016), mis annab tavapärase nõelaga süstimise ees märkimisväärseid eeliseid, sealhulgas leevendab nõela süstimist. kahjulikud mõjud, nõela ristsaastumine ja nõelatorkekahjustused (Zhang et al. 2015). Asjakohaselt on I faasi uuringus hinnatud kahte DNA vaktsiini Zika viiruse vastu, mis näitavad nõelavaba manustamise järgset suurenenud rakulist reaktsiooni võrreldes nõela kasutamisega (Gaudinski et al. 2018). Veelgi enam, projektorit kasutav marutaudivastase mRNA vaktsiini kohaletoimetamise platvorm näitas suurenenud antikehavastuseid (Alberer et al. 2017). Vaktsiini suuremat efektiivsust reaktiivsüstiga võib seostada vaktsiinide laiema levikuga, mille tulemuseks on suurem omastamine APC-de kasutamisel (Williams et al. 2000; Alberer jt 2017). Praegu kasutatakse kliinilistes uuringutes DNA vaktsiini manustamiseks tavaliselt ID või IM süsti, millele järgneb EP (Sardesai ja Weiner 2011). EP hõlmab pooride moodustumist naharakkudes, et suurendada geneetilise materjali rakkude omastamist elektriimpulsside abil (Pushparajah et al. 2021). IM EP meetodit kasutati peamiselt 1998. aastal (Aihara 1998), suurendades DNA vaktsiinide manustamiseks lihasrakkude läbitungivust (Rizzuto et al. 1999; Dupuis jt 2000; Sokołowska ja Błachnio-Zabielska 2019). Arvukad aruanded on näidanud paremat antigeeni ekspressiooni ja suurenenud antigeenispetsiifilisi immuunvastuseid in vivo, kasutades EP-d (Yan et al. 2008; Yan et al. 2009). On teatatud, et HIV DNA vaktsiin ADVAX suurendas immunogeensust pärast ülekandmist läbi EP (Vasan et al. 2011), võrreldes IM manustamisega (Vasan et al. 2010). Sellegipoolest kannatab EP lähenemisviis kõrgepinge kasutamise tõttu rakusurma ohu all (Gulce-Iz ja Saglam-Metiner 2019). Uudseid manustamisviise, nagu EP, RNA vaktsiini kohaletoimetamiseks uuritakse veel.

Tistanche kasulikud omadused meestele - tugevdavad immuunsüsteemi
EP efektiivsus isevõimetuva vaktsiini kohaletoimetamisel on geeniekspressiooni ja immuunvastuste osas hiirtel olnud sarnane plasmiidse DNA vaktsiinide omaga (Cu et al. 2013). EP ei ole aga suurendanud traditsiooniliste mittereplitseeruvate RNA vaktsiinide manustamise efektiivsust (Johansson et al. 2012), mis võib vähendada selle efektiivsust RNA vektorite dubleerimisel. Sellest tulenevalt on EP ja bioinjektorid soodsad COVID-19 DNA/RNA vaktsiinide parenteraalseks süstimiseks. Need lähenemisviisid aitavad kaasa DNA vaktsiinikandidaatide suuremale tootmisele ja kohaletoimetamisele ning parandavad tulemusi märkimisväärselt (Pushparajah et al. 2021).
Nukleiinhappepõhiste vaktsiinide eelised ja piirangud
Uudsete ja paljutõotavate immuniseerimismeetoditena annavad nukleiinhappepõhised vaktsiinid ülevaate ohutu ja kaitsva vaktsineerimise väljatöötamisest (Choi ja Chang 2013), mida näitasid miljonid inimesed COVID-19 pandeemia ajal. Nukleiinhappepõhistel vaktsiinidel on lühikesed arendustsüklid, mis hõlbustavad pandeemia ajal kiiret levikut. Rekombinantsete DNA vaktsiinide kasutamine nõuab DNA vektori tõhusat ülekandmist tuuma, transkriptsiooni ja seejärel translatsiooni soovitud antigeeniks (Leitner et al. 1999). Tänu mugavale manipuleerimisele ja odavale tootmisele on paljas plasmiidne DNA põnev vektor antigeenide esitlemiseks (Williams 2013). Tavaliselt sisaldab plasmiidne DNA põhilisi geneetilisi elemente, sealhulgas antigeeni kodeerivat geeni, promootorit, võimendajaid ja transkriptsiooni lõpetamise/polüadenüülimise järjestusi (Vogel ja Sarver 1995). Plasmiid-DNA platvorm on paljulubav biofarmatseutiline konstruktsioon, mida replitseeritakse kõrgel tasemel odavates prokarüootsetes rakkudes, kuigi see vajab puhastamist (Prazeres et al. 1999; Ferreira jt 2000; Suschak jt 2017). RNA vaktsiinid koosnevad mRNA molekulidest, mis sisaldavad antigeen-RNA-d, mis on ümbritsetud 3'-, polü-A-saba- ja 5'-otsaga ning neil puudub transkriptsiooninõue. (Zhang jt 2019). Mitmed RNA vaktsiinid läbivad eneseamplifikatsiooni, mida nimetatakse uueks väljatöötamisel olevaks tehnoloogiaks. Sellest lähtuvalt saab RNA molekuli replitseerida ja transleerida peremeesorganismis pärast sünnitust, vaatamata palja RNA ebastabiilsuse võimalusele, suurendades seega immunogeensete peptiidide ekspressiooni (Pardi et al. 2018; Zhang jt 2019; Wadhwa jt 2020) . MRNA-d lagundavad kõikjal esinevad ribonukleaasi ensüümid (Wadhwa et al. 2020; Xu et al. 2020). 3' polü-A saba ja 5'-7- metüülguanosiinkorgi lisamine on mRNA stabiilsuse ja translatsiooni suurendamiseks tsütosoolis kriitilise tähtsusega (Gallie 1991; Schlake et al. 2012). Vaktsiini omastamise ja ekspressiooni suurendamise strateegiaid on peamiselt hinnatud DNA vaktsiinide kui RNA vaktsiinide puhul, kuna DNA vajab tuuma jõudmiseks kahe rakumembraani läbimist. Seevastu RNA tungib tsütoplasmasse läbi ühe membraani (Rauch et al. 2018). DNA struktuuril on suhteliselt kõrgem stabiilsus. 7 aasta jooksul leiti, et plasmiidne DNA jäi puutumatuks, ilma erinevuseta äsja –20 kraadi juures hoitud DNAga (Walther et al. 2013; Pushparajah et al. 2021). Madal pH ja temperatuur on olulised DNA terviklikkuse säilitamiseks pikka aega. Seevastu RNA on äärmiselt temperatuuritundlik ja seda tuleb ensüümivabas keskkonnas hoida temperatuuril –70 kraadi, et pikendada selle poolestusaega (Jones et al. 2007).
Nukleiinhappepõhiste vaktsiinide väljatöötamise väljakutsed
On hästi teada, et COVID{0}} vaktsiinid peavad olema piisavalt tõhusad ja kaitsvad (Graham 2020) ning tekitama pikaajalise immuunsuse. Iga-aastane vaktsineerimine võib aga olla võimalik iga-aastaste gripivaktsiini kogemuste põhjal (Randolph ja Barreiro 2020; van Riel ja de Wit 2020). COVID{5}} vaktsiini väljatöötamine tekitab väljakutseid isegi uute platvormide puhul. Vaatamata koroonaviiruse spike-valgu vaktsiini kõrgele immunogeensusele ja kaitsele tekitab mutatsioonide esinemine muret ja viiruse taastekkimist. Seega on haiguse ilmnemise aja ja asukoha prognoos koos sihtvalgu järjestuse täpse omaksvõtmisega arendusprotsessi esirinnas, mis vajab kliiniliste uuringute nõuetekohast rakendamist (Lurie et al. 2020). DNA vaktsiinide peamine väljakutse on inimestel ja suurtel loomadel suhteliselt madalama immuunvastuse esilekutsumine kui väikeloomade süsteemides (Grunwald ja Ulbert 2015; Suschak et al. 2017). Märkimisväärne on see, et COVID{10}} vaktsiinidega seoses tuleb lahendada täiendavaid väljakutseid, nagu kaitse vastupidavus, tõhusus teatud alarühmades, viiruse leviku tõkestamine ja avalik aktsepteerimine (Pushparajah et al. 2021). Hilinenud antigeeni ekspressioon iseamplifitseerivates mRNA vaktsiinides võib piirata nende vaktsiinide tõhusust. See platvorm annab aga suurema saagikuse ja tagab seega samaväärse kaitse oluliselt väiksemate annuste juures (Vogel et al. 2018; Strizova jt 2021).
Hiljutised edusammud COVID-19 DNA ja mRNA vaktsiinide vallas
COVID-i vastase vaktsiini väljatöötamisel 94}}21), näiteks firmade Moderna ja Pfizer/BioNtech omad. Moderna vaktsiin sisaldab kogu COVID-19 spike-glükoproteiini mRNA kodeeringut, samas kui Pfizer/BioNtech sisaldab RBD mRNA järjestust (Brüssow 2020). Pfizer/BioNTechi ja Moderna vaktsiinide efektiivsuse tasemed on vastavalt 95% ja 94,5% (Rauch et al. 2021; Widge jt 2021). Moderna vaktsiini säilitustemperatuur on vahemikus –25 kuni –15 kraadi, Pfzeri vaktsiini oma aga –80 kuni –60 kraadi (Meo et al. 2021; Rauch jt 2021). Võrreldes Moderna vaktsiiniga on Pfizer/BioNTechi vaktsiinil madalamad kulud ja kõrvalmõjud (Rauch et al. 2021). Hiina teadlased töötasid välja veel ühe COVID{17}}-vastase mRNA vaktsiini ja kasutasid termostabiilset (vähemalt üks nädal temperatuuril 25 kraadi) RBD-d kodeerivat mRNA-d (Brüssow 2020). Teises uuringus on CureVaci kasutatud täispika S-valgu mRNA platvormina COVID-19 vaktsiini väljatöötamiseks koos kahe proliinijäägi asendajatega, et parandada valgu stabiilsust (Rauch et al. 2021). Ruklanthi de Alwis et al. (2021) töötasid välja isetranskribeeriva ja replitseeruva mRNA vaktsiini COVID-19 jaoks, kasutades täispikka S-valku ja replikoni (de Alwis et al. 2021), mida saab kasutada tõhusa ja ohutu üheannuselise vaktsiinina COVID-iga võitlemiseks- 19 (de Alwis et al. 2021). Samamoodi kasutati lipiidide nanoosakestesse (LNP) kapseldatud COVID-19 S valku kodeerivat isevõimendavat RNA-d, mis tõi välja kõrged antikehade tiitrid ja rakulised immuunvastused (McKay et al. 2020). SARS-CoV jaoks on välja töötatud mõned DNA vaktsiinikandidaadid, nagu S-, N- ja M-valgupõhised vaktsiinid. Nende hulgas on S-valgul põhinev DNA vaktsiin tõhusalt esile kutsunud kaitsva toime COVID-19 nakkuse vastu, tõenäoliselt tänu S-valgu olulisele rollile retseptoritega seondumisel (Zhao et al. 2020). INO-4800 on COVID-19 DNA vaktsiinikandidaat, mis kodeerib COVID-19 S valku (Sarwar et al. 2020; Smith jt 2020). Hiirte ja merisigade eelkliinilised tulemused näitasid humoraalset ja rakulist immuunvastust. I faasi kliinilistes uuringutes süstiti ID-tee kaudu kaks annust INO-4800, millele lisati CELLECTRA®2000 Inovio Pharmaceuticali kaudu EP (Diehl et al. 2013; Amante jt 2015). Täielikku immuunvastust selgitati antikehade ja rakuliste vastuste põhjal 34-l 36-st I faasi kliinilises uuringus osalejast. Täheldati kümmet teatatud kahjulikku mõju (AE) ilma tõsiste kõrvalnähtudeta (faas). Käivitati I/II faasi kliiniline uuring, et hinnata INO- 4800 immunogeensust, ohutust ja talutavust (Tebas et al. 2019). INO-4800 säilitustingimused on sarnased (Smith et al. 2020), mis loob vaktsiinide lihtsama levitamise. Lisaks on katseid alustanud mõned teised COVID{56}} DNA vaktsiinide rühmad. 2020. aasta juunis käivitati GX{58}} I ja IIa faasi kliiniline uuring värbamise. Osaka ülikooli (Jaapan), Takaro Bio ja AnGesi koostöös toodetud DNA vaktsiin AG0301-COVID-19 käivitas 2020. aasta juulis värbamise I ja II faasi kliinilistesse uuringutesse, et hinnata selle immunogeensus ja ohutus (Speiser ja Bachmann 2020). Viidi läbi I ja II faasi kliinilised uuringud, et hinnata kolme ZyCoV-D annuse immunogeensust ja ohutust (Kumar et al. 2021). See suukaudne vaktsiin kodeeris plasmiidses DNA-s spike-valku, mida amplifitseeriti dünaamiliselt elusas Bifidobacterium longumis, hästi äratuntavas soolestiku probiootilises bakteris. Käivitati veel üks I faasi kliiniline uuring, et hinnata spike-valku kodeerivat DNA vaktsiini CORVax12. Uuriti elektroporeeritud CORVax12 efektiivsust üksi või kombinatsioonis teise interleukiin 12 (IL-12) kodeeriva plasmiidiga. Arendamisel on mitmesugused COVID-19 mRNA vaktsiinid, mis on andnud paljulubavaid tulemusi (Leitner et al. 1999; Croyle et al. 2001). Mitmekesine lähenemisviis RQ3013-VLP (kodeerib S-, E- ja M-valke) väljatöötamisel oli tõhus in vivo, kasutades mRNA kokteili. See mRNA vaktsiin integreeriti muudetud nukleosiididega ja pakiti seejärel LNP-sse ja paljastas võime kutsuda esile hiirtel tugevaid rakulisi ja humoraalseid immuunvastuseid (Le et al. 2020; Lu et al. 2020a). Arginüülglütsüülasparagiinhappe (RGD) domeeni DNA vaktsiin kahes annuses 60 µg, kasutades elektroporatsiooni, parandas toimet BALB/cJ hiirtel (Guo et al. 2021). DNA vaktsiini intramuskulaarne süstimine ühe annusena (0,2 mg) võib Süüria hamstreid immuniseerida (Brocato et al. 2021). Teine DNA vaktsiin, milles kasutati kolmes annuses S-valku, kaitses reesusmakaake (Yadav et al. 2021). RBD liitmine B-hepatiidi viiruse preS1 aminoterminaalse ja IM süstiga kolme annusena (0, 2 ja 4) C57BL/6 hiirtel kutsus esile humoraalse ja rakulise immuunvastuse (Jeong et al. 2021). Lisaks stimuleeris S-valgu plasmiidse DNA ja S1 subühiku (rekombinantne valk) IM süstimine reesusmakaakidesse nädalatel 0, 2 ja 8 kolmes annuses neutraliseerivaid antikehi (Prompetchara et al. 2021). S-valgu IM+EP süstimine kolmes annuses (0., 2. ja 4. nädalal) ICR-hiirtele stimuleeris humoraalseid ja rakulisi reaktsioone (Li et al. 2021). Teised kliinilistes uuringutes kasutatud DNA vaktsiinid on sisaldanud S-valku I/II faasis juunis 2022 (NCT04445389, IM-tee täiskasvanutel vanuses 18–50 aastat), juulis 2021 (NCT04463472, IM-tee täiskasvanutel vanuses 20–60 aastat), september 2021 (NCT04527081, IM marsruut 20–65-aastastele täiskasvanutele) ja I faas (NCT04336410, ID marsruut 18-aastastele ja vanematele), veebruar 2022 (NCT04334980, suukaudne 18-aastastele ja vanematele täiskasvanutele) ja juuni 2021 NCT04591184, IM tee täiskasvanutel vanuses 18–84 aastat). Lisaks hõlmasid kliinilistes uuringutes mRNA vaktsiinid 2021. aasta novembris II faasi (NCT04515147, IM, 18–60-aastased), II–III faasi 2022. aasta detsembris (NCT04368728, IM 18–85-aastastel täiskasvanutel) ja I faasi vaktsiine. juunil 2021 (NCT04566276, IM täiskasvanutel vanuses 18–75 aastat). COVID-eVax oli RBD-l põhinev vaktsiin, mis kutsus hiirtel, tuhkrutel ja rottidel 38 päeva pärast esile piisava immuunvastuse (Conforti et al. 2022). Kahte (X-19 ja GX-19N) DNA vaktsiini, mis kodeerivad spike- ja nukleokapsiidivalke, hinnati I faasi uuringutes täiskasvanutel vanuses 19–49 aastat ja seonduvad antikehad olid tuvastatavad juba teise vaktsineerimisannuse korral. Nende vaktsiinide ohutus ja talutavus leidis kinnitust, kus GX-19N kutsus esile kõrgemad T-rakkude tasemed ja antikehade vastused (Ahn et al. 2022). Xcl1-SARS-CoV-2 spike-fusioon-DNA vaktsiin kutsus esile kõrgema antikehade ja T-rakkude poolt vahendatud reaktsioonide määra võrreldes plasmiidi sisaldava spikegeeniga eraldi in vitro ja in vivo (Qi et al. 2022). Hiljutine bakuloviiruse COVID{153}} Delta DNA vaktsiin võib kaitsta 100% hiirtest COVID{155}} eest (Jang et al. 2023). Lineaarne DNA (linDNA), mis kodeerib SARS-CoV-2 RBD-d (Lin-COVIDeVax), suutis esile kutsuda antikehade ja T-rakkude vastuseid ning pakkuda ohutust ning sellel puudusid kõrvaltoimed (Conforti et al. 2023). Tabelis 1 on esitatud kliinilised uuringud ja heakskiidetud nukleiinhappepõhised vaktsiinid COVID-i vastu{163}}. Värskendatud andmetel on kogu maailmas COVID{167}} vaktsiini saanud 229 820 324 inimest, kelle hulgas on Aafrika riikidest pärit vaktsineerimise määr olnud madalam (https://www.usnews.com/news/coronavirus-and -vaccine-news, https://www.bloomberg.com/graph ics/covid-vaccine-tracker-global-distribution/). Sellest lähtuvalt on vaktsineerimise määr seotud erinevate piirkondade/piirkondade majandustingimustega.
COVID-19 vaktsiinide võimalikud ohutusprobleemid
Ohutuse jälgimine iga väljatöötatud ennetava või profülaktilise vaktsiini puhul on üks olulisi aspekte. MRNA vaktsiini tootmisprotsessides ei ole toksiliste kemikaalide või rakukultuuri kasutamine nõutav, seega tuntud kui ohutu platvorm. Lühike tootmisaeg vähendab ka mikroorganismidega saastumise ohtu (Wang et al. 2020). Kõige sagedamini teatatud kõrvaltoimete hulka kuuluvad peavalu, väsimus ja muud süsteemsed rasked nähud, nagu palavik, külmavärinad, müalgia, oksendamine, kõhuvalu ja harvaesinev kõhulahtisus. Siiski ei ole mRNA vaktsiini saajate seas surma täheldatud (Chapin-Bardales et al. 2021; Skowronski ja De Serres 2021). Mõningaid süsteemseid kõrvaltoimeid, nagu anafülaksia, teatatakse tavaliselt allergikutel ja hinnanguliselt 2,5–11,1 juhtu miljoni annuse kohta (Shimabukuro et al. 2021). Tugev immuunvastus teistest noorematel inimestel võib põhjustada kõrgeid süsteemseid sündmusi ja pärast teise vaktsiiniannuse süstimist on teatatud rohkem kõrvaltoimeid võrreldes esimese annusega (Mees 2021; Skowronski ja De Serres 2021). Lisaks on kõige lokaalsemate kõrvalnähtudena teatatud valu süstekohas, punetusest ja tursest (Anand ja Stahel 2021). Heakskiidetud mRNA vaktsiinide (sh Pfizer/BioNTech ja Moderna) piisavatele tõenditele tuginedes ei ole raseduse ajal raseduse katkemise ohtu (määr =0%) tõestatud (Mees 2021). Märkimisväärselt on DNA vaktsiinid piisavalt ohutud, kuid mitte alati immunogeensed; seetõttu vajab piisav immuunvastus täiendavaid annuseid. Humoraalne immuunvastus ei ole inimkatsetes olnud ühtlane, samas kui rakuline immuunsus näib olevat tavalisem. Sellest lähtuvalt on DNA vaktsiinide ohutus vanemate ja nooremate populatsioonide seas soodsam (Ledgerwood et al. 2011; Houser jt 2018; Carter jt 2019). Ohutusprobleemid viitavad transfekteeritud DNA võimalikule integreerumisele peremeesorganismi idutee ja somaatilistesse rakkudesse. Nendel juhtudel võib geeniekspressiooni düsregulatsioon tekkida koos mitmete märkimisväärsete mutatsioonidega. Sellegipoolest kasutatakse DNA vaktsiini väljatöötamisel tavaliselt ainult ekstrakromosomaalseid ja puudulikke kromosomaalseid integratsiooniplasmiide. Pealegi jääb enamik plasmiide manustamiskohta (Schalk et al. 2006). Hiljutine süstemaatiline ülevaade ja metaanalüüs näitas, et mRNA vaktsiine seostatakse teiste platvormidega võrreldes suuremate kõrvaltoimetega (Kouhpayeh ja Ansari 2022). Hiljuti täheldati 34-aastasel naisel harvaesinevat BNT162b2 mRNA vaktsiiniga seotud müosiidi juhtumit (Magen et al. 2022). DNA metüülimine ja vastavad epigeneetilised muutused häirivad ka DNA ja mRNA vaktsiinide efektiivsust (Pang et al. 2022). Märkimisväärselt on mitmed heakskiidetud nukleiinhappevaktsiinid (ZyCoV-D, intradermaalselt kasutatav DNA plasmiidvaktsiin, India), BNT162b2 (mRNA, 2 annust, Saksamaa), mRNA- 1273 (Moderna, USA, 2 annust), ARCoV (WALVAX, Hiina) ja kliinilised uuringud, sealhulgas 302-COVID19 (DNA plasmiidvaktsiin, II/III faasi intramuskulaarne, Jaapan), INO-4800 (DNA plasmiid, II/III faas, intradermaalne, Hiina), GX{{36 }}N (DNA vaktsiin, Genexine, faas II/III), Covigenix VAX-001 (DNA vaktsiin, Entos Pharmaceuticals, faas I/II, intramuskulaarne), COVID-eVax (DNA vaktsiin, I/II faas, intramuskulaarne , Rooma) ja bacTRL-Spike (DNA vaktsiin, I faas, suukaudne, Symvivo) (Sheridan 2021; Liu ja Ye 2022a). Need vaktsiinid on stimuleerinud nii humoraalset kui ka rakulist immuunsust, välja arvatud GX-19N ja AG0302- COVID-19. Mõned COVID-19 nukleiinhappepõhiste vaktsiinide kõrvalmõjud on valu, lümfadenopaatia, erüteem, punetus, turse, iiveldus, väsimus, artralgia, müalgia, palavik, südame-hingamise seiskumine, insult, ülitundlikkusreaktsioon, alkohoolne maksahaigus, Belli halvatus , paroksüsmaalne ventrikulaarne arütmia ja surm (Norquist jt 2012; McNeil ja DeStefano 2018; Baden jt 2021; Momin jt 2021; Liu ja Ye 2022b, 2022a).
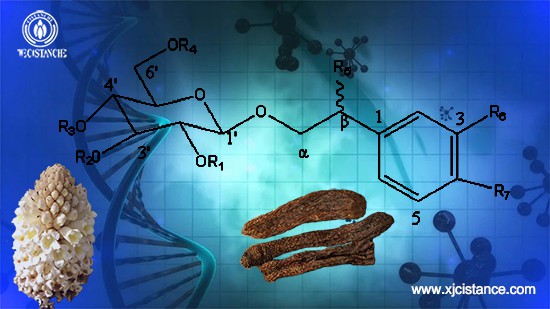
Fenüületanoolglükosiid on Cistanche deserticola peamine aktiivne komponent
Järeldus
Kiire COVID{0}} pandeemia on muutnud rahuldamata vajaduse haiguse ennetamiseks tõhusate vaktsiinide väljatöötamise järele. Kuigi DNA vaktsiinide immunogeensus loomadel on vastuvõetav, on kliiniline valideerimine inimestel õigustatud. RNA vaktsiinid võivad pakkuda sobivaid immunoloogilisi omadusi ja olulisi eeliseid võrreldes DNA vaktsiinidega. RNA ebastabiilse olemusega seotud probleeme on lahendatud, kasutades selle lagunemise peatamiseks sobivaid ladustamismeetodeid ja preparaate. Vaktsiini ohutus on samuti oluline ja seda ei saa suurema tõhususe nimel kahjustada. COVID-19 leviku tõkestamiseks on heakskiidetud nukleiinhappepõhised vaktsiinid. Osalejate jälgimist tuleb jätkata. Nukleiinhappepõhise COVID{5}} vaktsiini kõrvalmõjude kohta on vaja õppida. Veelgi enam, vaktsiinide ümberhindamine ja polüvalentsete vaktsiinide väljatöötamine või pan-koronaviiruse strateegiad on paljulubavad, arvestades uute murettekitavate variantide taastekkimist.
Tabel 1 Kliinilised uuringud ja heakskiidetud COVID-19 vaktsiinid ning nende omadused


Viited
Abdelmageed MI jt (2020) Inimese COVID-i E-valgu vastase multiepitoobipõhise peptiidvaktsiini väljatöötamine-19: immunoinformaatika lähenemisviis. Int J Biomed Clin Anal. https://doi.org/ 10.1155/2020/2683286
Abera G, Berhanu G, Tekewe A (2012) Ribosüümid: potentsiaalsete farmatseutiliste rakendustega nukleiinhappeensüümid: ülevaade. Pharmacophore 3:164–178
Ahn JY jt (2022) Kahe rekombinantse DNA COVID-19 vaktsiini ohutus ja immunogeensus, mis sisaldavad piiki või naastu ja nukleokapsiidi valke kodeerivaid piirkondi: kahe avatud, mitte-randomiseeritud 1. faasi uuringu vaheanalüüs tervetel täiskasvanutel. Lancet Microbe 3:e173–e183. https://doi.org/10.1016/ S2666-5247(21)00358-X
Aihara H (1998) Miyazaki J. geeniülekanne lihasesse elektroporatsiooni teel in vivo. Nat Biotechnol 16:867–870. https://doi.org/10. 1038/nbt0998-867
Alberer M et al (2017) MRNA marutaudivaktsiini ohutus ja immunogeensus tervetel täiskasvanutel: avatud, mitte-randomiseeritud, prospektiivne, esimene inimesel toimuv 1. faasi kliiniline uuring. The Lancet 390:1511–1520.https://doi.org/10.1016/s0140-6736(17)31665-3
Amante DH jt (2015) Naha transfektsioonimustrid ja elektroporatsiooniga tõhustatud plasmiidi kohaletoimetamise ekspressioonikineetika, kasutades kaasaskantavat järgmise põlvkonna dermaalset elektroporatsiooniseadet CELLECTRA-3P. Inimese geeniteraapia meetodid 26:134–146. https:// doi.org/10.1089/hgtb.2015.020
Anand P, Stahel VP (2021) Covid-19 mRNA vaktsiinide ohutuse ülevaade: ülevaade. Patsient Saf Surg 15:20. https://doi.org/10.1186/ s13037-021-00291-9
Baden LR jt (2021) mRNA-1273 SARS CoV-2 vaktsiini tõhusus ja ohutus. N Engl J Med 384:403–416. https://doi.org/10. 1056/NEJMoa2035389
Becker PD, Noerder M, Guzmán CA (2008) Geneetiline immuniseerimine: bakterid kui DNA vaktsiini kohaletoimetamise vahendid. Hum Vaccin 4:189–202.https://doi.org/10.4161/hv.4.3.6314
Borah P et al (2021) COVID-i RNA vaktsiinikandidaatide perspektiivid-19. Esiosa Mol Biosci. https://doi.org/10.3389/fmolb. 2021.635245
Brocato RL et al (2021) SARS-CoV-2 DNA vaktsiini kaitsetõhusus metsikut tüüpi ja immuunsupresseeritud Süüria hamstrite puhul. Npj Vaktsiinid 6:1–7.https://doi.org/10.1038/s41541-020-00279-z
Brüssow H (2020) Püüdlused COVID-19 vaktsiini suunas. Environ Microbiol. 22:4071–4084. https://doi.org/10.1111/1462-2920. 15225
Buchholz UJ et al (2004) Raske ägeda respiratoorse sündroomi koroonaviiruse struktuurvalkude panus kaitsvasse immuunsusesse. Proc Natl Acad Sci 101:9804-9809. https://doi.org/ 10.1073/pnas.0403492101
Campbell JD (2017) CpG adjuvandi 1018 väljatöötamine: juhtumiuuring. Vaktsiin Adjuv. https://doi.org/10.1007/ 978-1-4939-6445-1-2
Carter C jt (2019) Uuritava hooajalise influenza hemaglutiniini DNA vaktsiini, millele järgneb nahasiseselt või lihasesiseselt manustatud trivalentse inaktiveeritud vaktsiini ohutus ja immunogeensus tervetele täiskasvanutele: avatud randomiseeritud 1. faasi kliiniline uuring. PLoS One 14:e0222178. https://doi.org/10.1371/ journal.pone.0222178
Chapin-Bardales J, Gee J, Myers T (2021) Reaktogeensus pärast mRNA-põhiste COVID-19 vaktsiinide saamist. JAMA. https://doi. org/10.1001/jama.2021.5374
Chen Y, Cheng L, Lian R, Song Z, Tian J (2021) COVID{1}} vaktsiiniuuringud keskenduvad ohutusele, tõhususele, immunoinformaatikale ning vaktsiinide tootmisele ja kohaletoimetamisele: VOSvieweril põhinev bibliomeetriline analüüs. Biosci suundumused. https://doi.org/10.5582/bst.2021. 01061
Choi Y, Chang J (2013) Viirusvektorid vaktsiinirakenduste jaoks. Clin Exp Vaccine Res 2:97.https://doi.org/10.7774/cevr.2013.2.2.97
Chowdhury MA, Hossain N, Kashem MA, Shahid MA, Alam A (2020) Immuunvastus COVID-is-19: ülevaade. J Nakata rahvatervist. https://doi.org/10.1016/j.jiph.2020.07.001
Coban C, Kobiyama K, Jounai N, Tozuka M, Ishii KJ (2013) DNA vaktsiinid: lihtne DNA sensor? Hum Vaccin Immunother, 9:2216–2221.https://doi.org/10.4161/hv.25893
Conforti A jt (2022) COVID-eVax, elektroporeeritud DNA vaktsiinikandidaat, mis kodeerib SARS-CoV-2 RBD-d, kutsub loommudelites esile kaitsereaktsiooni. Mol Ther, 30:311–326. https://doi. org/10.1016/j.ymthe.2021.09.011
Conforti A, Sanchez E, Salvatori E, Lione L, Compagnone M, Pinto E jt (2023) SARS CoV-2 retseptoriga seonduvat domeeni kodeeriv lineaarne DNA vaktsiinikandidaat kutsub kodukassidel esile tugeva immuunvastuse ja neutraliseerivad antikehad. Mol Ther-Metho Clinic Dev 28:238–248. https://doi.org/10.1016/j.omtm.2022. 12.015
Croyle M, Cheng X, Wilson J (2001) Viirusvektorite füüsilist stabiilsust suurendavate preparaatide väljatöötamine geeniteraapia jaoks. Gene Ther, 8:1281–1290.https://doi.org/10.1038/sj.gt.3301527
Cu Y et al (2013) Iseamplifitseerivate mRNA vaktsiinide parem kohaletoimetamine ja tõhusus in situ elektroporatsiooni abil. Vaktsiinid 1:367–383. https://doi.org/10.3390/vaccines1030367


