

Limaskesta vaktsiinid, immuunsuse steriliseerimine ja SARS-CoV-2 virulentsuse tulevik
Apr 06, 2023
Abstraktne:
Immuunsuse steriliseerimine pärast vaktsineerimist on soovitav, et vältida vaktsiinidest põhjustatud nakkuse levikut, mis võib olla eriti ohtlik haiglatingimustes nõrkade patsientide ravimisel. Immuunsuse steriliseerimiseks on vaja neutraliseerivaid antikehi nakkuskohas, mis hingamisteede viiruste (nt SARS-CoV-2) puhul tähendab neutraliseeriva IgA esinemist limaskesta sekretsioonides. Süsteemne vaktsineerimine intramuskulaarse manustamisega ei indutseeri vaktsiini antigeenide vastu neutraliseerivat IgA-d või see on madala tiitriga. Steriliseeriva immuunsuse tagamiseks on vaja limaskesta praimida või turgutada.
Mündi teisel küljel võib immuunsuse steriliseerimine inimestevahelise leviku nullimise teel piirata SARS-CoV-2 loomade reservuaarides, hoides ära virulentsuse spontaanse nõrgenemise inimestel, nagu arvatavasti juhtus endeemiliste koroonaviirustega. Siin käsitleme iga vaktsineerimisstrateegia plusse ja miinuseid, praegu väljatöötamisel olevaid limaskestade SARS-CoV-2 vaktsiine ja nende mõju rahvatervisele.
Lisaks immuunsuse tugevdamisele vaktsiinide abil on ebatervisliku toitumise, vähese liikumise korral sagedased ärevushäired ja puhkusepuudus ning me jääme kergesti haigeks. Mõnikord võib põhjus teadmata põhjustel, korraliku tervishoiu puudumise tõttu, nõrgeneda võib ka organismi immuunsüsteem. Immuunsüsteem on meie esimene kaitseliin haiguste vastu. Seetõttu peaksime oma immuunsust parandama. Lisaks on uuringutes leitud, et Cistanche'i rikkad polüsahhariidid suudavad seista vastu isoprenaliini (ISO) ja deksametasooni (DEX) inhibeerivale toimele lümfotsüütide proliferatsioonile kõrgemates kontsentratsioonides ning seista vastu suure kontsentratsiooniga kasvaja supressori inhibeerivale toimele lümfotsüütide proliferatsioonile, teha koostööd. väikese kasvaja supressori kontsentratsiooniga- lümfotsüütide proliferatsiooni soodustamiseks, immuunsuse tugevdamiseks.

Click cistanche tubulosa ekstrakti pulbertoode
Märksõnad:
COVID-19; SARS-CoV-2}}; neutraliseerivad antikehad; BNT162b2; mRNA-1273; IgA; IgG; immuunsuse steriliseerimine; limaskestade vaktsiinid; intranasaalne vaktsiin; suukaudsed vaktsiinid.
1. Sissejuhatus
Praegu heakskiidetud intramuskulaarselt süstitavad COVID{0}} vaktsiinid (kokkuvõte joonisel 1) vähendavad tõhusalt haiguse tõsidust ja sümptomaatilisi juhtumeid, kuid võimaldavad siiski asümptomaatiliselt nakatuda. Epidemioloogilisest vaatenurgast on kõige murettekitavam see, et need vaktsiinid võimaldavad SARS-CoV-2 edasikandumist ja viiruse võime paljuneda vaktsineeritud peremeesorganismis võimaldab valida vaktsiiniresistentseid variante. Praegused COVID{5}} vaktsiinid indutseerivad peamiselt IgG klassi antikehi (peamiselt IgG1 ja IgG3 alamklasside [1]) antikehi ning respiratoorset IgA-d vähe või üldse mitte.
Kuigi immuunsuse hindamiseks jälgitakse tavaliselt IgG taset seerumis, ei eritu seda isotüüpi erinevalt IgA-st polümeerse Ig retseptori (pIgR) kaudu limaskesta luumenisse ja peab nendesse kohtadesse kogunemiseks tuginema passiivsele transpordile. Pärast IgG süsteemset manustamist jõuab ainult üks 1000 seerumi molekulist bronhoalveolaarse loputusvedeliku (BAL) vedelikku [2–4]. Sellest tulenevalt on pIgR-d siduvate peptiididega kunstlikult sulandatud IgG rohkem esindatud hingamisteede sekretsioonides ja rohkem kaitsev loomkatsete mudelites [5].
Kuna seerumi IgG ei tungi tõhusalt läbi limaskesta ja vaktsiini poolt esile kutsutud IgG mõõtmised seerumis ei näita kaitset hingamisteede infektsioonide eest. Sellegipoolest käivitab järgnev põletik pärast intramuskulaarse vaktsiiniga süstimist mälu-B-rakkude migratsiooni ja IgA sekretsiooni limaskesta kohtades [6]. Lisaks suurendab igasugune põletik hingamisteedes seerumi antikehade tungimist sellesse piirkonda nii, et seerumi immuunsus võib pakkuda varajast kaitset areneva infektsiooni taustal. Seega pakub intramuskulaarne vaktsineerimine nasaalsete hingamisteede teatud kaitset SARS-CoV-2 vastu, mida tõendab sümptomaatilise haiguse vähenemine pärast nakatumist.

Asümptomaatiline infektsioon moodustab ühe kolmandiku SARS-CoV-2-positiivsetest nasofarüngeaalsetest tampooniproovidest (NPS) ja peaaegu 75 protsenti juhtudest on positiivse NPS-i ajal asümptomaatilised, jäävad asümptomaatiliseks [7]. Tõenäoliselt on need hinnangud veelgi suuremad vaktsineeritute puhul, kus läbimurdeinfektsioone on demonstreeritud asümptomaatilistel isikutel [8]. Inimene võib end hästi tunda, kuid tal on ninaneelu limaskestas paljunev SARS-CoV{7}} ja ta suudab seda teistele edasi anda. Arvestades, et süstemaatiline igapäevane PCR-test oleks randomiseeritud kontrollitud uuringutes (RCT) liiga invasiivne ja kulukas, on mitmed uurijad pooldanud juhusliku NPS-i PCR-i kasutamist, et parandada vaktsiini efektiivsuse (VE) hinnanguid SARS-CoV-2 nakkuse vastu. Selliseid viiruskoormuse mõõtmisi saab kasutada ka levikuvastase efektiivsuse hindamiseks, eeldades, et viiruskoormuse ja edasikandumise vahel on seos [9].
Seda seisukohta toetavad ka andmed kliiniliselt heakskiidetud monoklonaalsete antikehade (mAb) kohta Spike valgu vastu – SARS-CoV-2-vastaste mAb-de intravenoosne või subkutaanne süstimine toob kaasa suboptimaalse biosaadavuse hingamisteedes, pärssides SARS-CoV-2 replikatsiooni ja kopsukahjustusi, kuid võimaldades loommudelites tugevat nakatumist nina turbinaatides [10]. Sel põhjusel uuritakse SARS-CoV{8}}-vastaste mAb-de paikset manustamist [11].
Siin käsitleme strateegiaid asümptomaatilise kandja staatuse vältimiseks vaktsineeritutel (st kuidas kutsuda esile niinimetatud "steriliseerivat immuunsust") ja selle lähenemisviisi teoreetilisi riske.
2. Infektsiooni ja haiguse erinevus
Sellele lihtsale küsimusele on raske täpselt vastata. Vaktsiinid kutsuvad esile immuunvastused, mis tekivad siis, kui peremeesorganism konkreetse mikroobiga kokku puutub. Vaktsiinide toimimise uurimiseks on oluline teha vahet infektsioonil ja haigusel. Nakatumine on mikroobi omandamine peremehe poolt, samas kui haigus on peremees-mikroobi interaktsiooni seisund, kui peremeesorganism on saanud homeostaasi mõjutamiseks piisavalt kahju [12]. Enamiku edukate vaktsiinide puhul on efektiivsuse mõõdupuuks olnud haiguse vähenemine, kuna nakatumise sagedust ei mõõdetud. Enamik praeguseid vaktsiine kutsuvad esile T-lümfotsüütide vastuseid ja peamiselt IgG, mis kaitseb süsteemse infektsiooni eest. Robbins et al. tegi ettepaneku, et vaktsiinid toimivad nakatava inokulaadi neutraliseerimise teel ja et see protsess nõuab teatud koguses antikehi [13].
Kui kohad, kus esmane nakatumine võib aset leida, on seerumi IgG-le ligipääsetavad, võivad vaktsiinid nakatumist ära hoida, kuid enamikul juhtudel hoiavad vaktsiinid haigusi ära, vähendades inokulaadi kogust, mis omakorda vähendab peremeesorganismi kahjustusi ja haigestumise tõenäosust. SARS-CoV-2 puhul on tõendeid selle kohta, et esialgne infektsioon ja replikatsioon toimuvad nina ripsmelistes rakkudes [14], mis ei ole seerumi IgG-le ligipääsetav, välja arvatud juhul, kui limaskesta kudedes on põletikuline kahjustus, mis võimaldab seerumi valkude transudatsiooni kohta. Seega hoiavad praegused COVID-19 vaktsiinid haigusi, kuid mitte nakatumist.
3. Immuunsuse steriliseerimine
Immuunsuse steriliseerimine nõuab väljakutset pakkuva sissetungija õigeaegset neutraliseerimist humoraalse immuunsüsteemi poolt. See tähendab, et antikehad on tavaliselt olulisemad kui raku vahendatud immuunsus, vähemalt viiruste ja mikroobide puhul, kus spetsiifilised antikehad võivad infektsiooni otseselt mõjutada. Hingamisteede limaskestadel on IgA kõige tõhusam antikehade klass. Sekretoorne IgA (sIgA), mis koosneb dimeersest IgA-st, J-ahelast ja sekretoorsest komponendist, eritub näärmetest (nt sülje- või piimanäärmest) ja limaskestaga seotud lümfoidkoest (MALT) limaskestadele, kus see neutraliseerib patogeenid.
Huvitav on see, et inimese pandeemiaeelses rinnapiimas [15,16] ja süljes [17] sisalduv sIgA ristreageerib SARS-CoV-ga-2, kuid kas selline heteroloogne immuunsus on kaitsev, jääb teadmata. sIgA, mille poolväärtusaeg on 6,3 päeva, on samuti kasulik biomarker hiljutise SARS-CoV{11}} nakkuse määramisel. Limaskesta immuunsust kasutatakse ära ka passiivsete immunoteraapiate jaoks. Näiteks on mitmed uurijad pakkunud välja söödava [18] või intranasaalse [19] munast pärineva IgY kasutamise passiivseks immunoteraapiaks ning immuunsuse esilekutsumiseks uuritakse ka viirusantigeenide ekspressiooni söödavate taimede (nt salati) lehtedes [20]. Samamoodi neutraliseerivad inhaleeritavad bispetsiifilised ühedomeenilised antikehad Omicroni hiiremudelis [21].

4. Kliiniliselt edukad ajaloolised pretsedendid limaskestade vaktsiinidega
Paljud limaskesta pinnad on potentsiaalsed kohad vaktsiini manustamiseks (nt sidekesta, nina, suu, kopsude, tupe ja pärasoole limaskestad); logistilised ja kultuurilised põhjused on aga pannud teadlasi keskenduma peamiselt suu kaudu, nina kaudu ja kopsu kaudu [22]. Hingamisteede limaskestade vaktsiinid pakuvad traditsiooniliste vaktsineerimismeetoditega võrreldes mitmeid praktilisi eeliseid, hõlbustades massvaktsineerimiskampaaniaid [23] – vaktsiini stabiilsuse ja säilivusaja pikenemine kuivpulbriliste vaktsiinide puhul, valutu manustamine kodus kasutatavate ühekordsete inhalaatorite abil [24] (mis vähendab oluliselt vaktsiinide nõudeid). koolitatud tervishoiutöötajad) ja lubavad esile kutsuda immuunvastuse, sealhulgas sIgA [23].
Nõrgestatud viirustel põhinevate kliiniliselt edukate limaskestade vaktsiinide näidete hulka kuuluvad suukaudsed vaktsiinid seedetrakti viiruste (polioviirus ja rotaviirus) ja ninasisesed vaktsiinid hingamisteede viiruste (gripiviirus ja adenoviirus) vastu.
Esimene edukas lastehalvatuse vaktsiin, mille Jonas Salk töötas välja 1955. aastal, inaktiveeriti ja manustati intramuskulaarselt. Nagu praegused COVID-19 vaktsiinid, vähendas see haigestumise riski, kuid ei suutnud nakatumist ära hoida. 1960. aastal töötas Albert Sabin välja suukaudse lastehalvatuse vaktsiini, kasutades kolme nõrgestatud polioviiruse tüve; see lähenemisviis on viinud poliomüeliidi peaaegu täieliku likvideerimiseni kogu maailmas – 2020. aastal teatati Pakistanis ja Afganistanis vaid 140 juhtumist. Sellegipoolest põhjustas nõrgestatud tüve rekombinatsioon metsiku polioviirusega lokaalseid puhanguid, mille põhjustas kolmevalentses suukaudses vaktsiinis sisalduv 2. tüüpi polioviirus (nn vaktsiinist tuletatud polioviirus (cVDPDV2)), 2020. aastal 1089 juhtu 26 riigis. See julgustas pärast 2016. aasta aprilli tüve eemaldamine kolmevalentsest suukaudsest vaktsiinist ja lõpuks naasmine inaktiveeritud vaktsiinide juurde [25,26].
Rotaviiruse suukaudseid vaktsiine on juba mõnda aega kasutatud lastel, mis on näidanud kõrget efektiivsust ja ohutust [27, 28].
Intranasaalseid gripivaktsiine kasutati esmakordselt 1960. aastatel endises Nõukogude Liidus. Litsentsitud intranasaalsed gripivaktsiinid inimestele, kes kasutavad nasofarünksiga seotud lümfoidkudet (NALT), hõlmavad FluMist/Fluenz™ (MedImmune, Gaithersburg, MD, USA) [29] ja India Serum Institute of India poolt toodetud nõrgestatud elussprei Nasovac™. Sama instituut töötas välja ka intranasaalse, elus nõrgestatud gripiviiruse A(H1N1) vaktsiini [30]. Ükski suurematest gripivaktsiinide tootjatest ei ole veel limaskestavaktsiinidega tegelenud, mistõttu enamik gripivaktsiine manustatakse tänapäeval ikka veel intramuskulaarselt
Oral vaccines against wild-type adenovirus serotype 4 and 7 (Ad4 and Ad7) were developed by the National Institutes of Health (NIH) and the US Department of Defense (DoD) in the 1970s. They were originally co-administered [31,32] and then re-formulated in 2011 [33–37]. Both vaccines have increased safety since they do not disseminate systemically while inducing systemic serum homotypic nAb [34,36,37], and providing >90-protsendiline tõhusus haiguste vastu 12 nädala pärast [33,34,36,37], mis kestab vähemalt 6 aastat [38].
Seetõttu on limaskestade kaudu manustatavad vaktsiinid tõhusad ja kliinilises kasutuses. Need vaktsiinid on olulised pretsedendid COVID{0}} pandeemia kontrolli all hoidmiseks ja julgustavad sarnaseid vaktsiine SARS-CoV-2 vastu kasutusele võtma.
5. IgA antikehad mängivad võtmerolli SARS-CoV neutraliseerimisel-2, kuid need tekivad harva pärast intramuskulaarset vaktsineerimist
Looduslik SARS-CoV-2 infektsioon taandub tavaliselt seerumi monomeerse IgA ilmumisega. Suur osa taastuva plasma neutraliseerivast aktiivsusest on IgM ja IgA fraktsioonides [39, 40]. Kuigi seerumi IgG kuni Spike valk on 7 kuu pärast endiselt olemas 92 protsendil osalejatest, vähenevad seerumi IgA (ja IgM) antikehad kiiresti pärast esimest kuud pärast haiguse algust [41–43].
Dimeersel IgA-l sekretsioonis on samuti oluline roll SARS-CoV{1}} neutraliseerimisel [44] – pärast nakatumist areneb raske COVID-ga seotud ägeda respiratoorse distressi sündroomiga (ARDS) patsientidel seerumi IgA tase väga kõrge. [45] ja Spike-spetsiifiline IgA on inimese rinnapiimas domineeriv [15, 16, 46].
In general, intramuscularly delivered vaccines induce poor mucosal IgA responses. After the first immunization, BNT162b2 induces anti-Spike IgG1, IgG3, and IgA1 (and sometimes IgG2 and IgA2) in serum, but only IgG in saliva. One to two weeks after the second dose, IgG levels in saliva and the upper respiratory tract are boosted, while IgA appears in some subjects [47]. Serum IgA has kinetics of induction and time to peak levels (21 days after the first dose and 7–10 days after the second dose) that are similar to IgG, but a faster decline (>23% vähenemine päeva tipust pluss 80 pärast esimest annust) [48].
Inimese rinnapiima puhul erineb isotüübi profiil antikehavastuse osas pärast COVID-i-19 ja pärast vaktsineerimist. Vastupidiselt loomulikule infektsioonile suurendab imetamise ajal immuniseerimine mRNA vaktsiinidega retseptorivastase domeeni (RBD) IgA taset piimas [49, 50], kuid mitte seerumis [50]. Kahjuks ainult<10% of milk samples from vaccinees have high IgA endpoint titers, but secretory antibody released in milk is both stable and resistant to enzymatic degradation in neonatal mucosal tissues [3,4].
IgA vähesus pärast mitte-limaskesta vaktsineerimist viitab sellele, et süsteemselt vaktsineeritud patsiendid, kuigi sümptomid on kergelt või asümptomaatilised, võivad siiski nakatuda SARS-CoV-ga-2. Puuduvad veenvad tõendid selle kohta, kas asümptomaatiliselt nakatunud vaktsineeritavad on nakkavad, kuna teoreetiliselt võivad virioonid olla immuunkomplekssed ja mitte nakkavad [51–54], kuid nakatunud vaktsineeritute ja nakatunud põliselanike NPS-is täheldatud sarnane viiruskoormus viitab sellele, et tõsine edasikandumise oht. Vaktsineeritud isikud, kellel tekivad sümptomaatilised (nt läbimurdelised) infektsioonid, on aga SARS-CoV -2 [55] suhtes nakkavad. Samuti on teatatud kergetest COVID-19 juhtudest seropositiivsetel vaktsineeritutel, kelle PCR oli erinevates bioloogilistes maatriksites (nt rektaalsed tampooniproovid) [56], mis viitavad sellele, et infektsioon nendes vaktsiinides ei piirdu ainult ninaneeluga. Asümptomaatilised vaktsineeritud kandjad on eriti murettekitavad haiglates [8], kus kliinikus ja kirurgilistel endonasaalsetel protseduuridel tekivad tavaliselt aerosoolid [57].
Kõik süsteemsed vaktsiinid ei ole limaskesta IgA esilekutsumisel võrdselt ebaefektiivsed. Näiteks BNT162b2, kuid mitte CoronaVac, kutsus esile nasaalse anti-S1 IgA vastuse juba 14 päeva pärast esimest annust 72 protsendil katsealustest, mis püsis kuni 50 päeva pärast teist annust 45 protsendil katsealustest [58] ja indutseeris ka IgA-d rinnapiimas [59]. Sellegipoolest on BNT162b2 või mRNA{12}} poolt indutseeritud IgA tase limaskestades madal pärast esimest annust ja langeb pärast teist annust.

6. SARS-CoV vastase steriliseeriva immuunsuse saavutamiseks on vaja vaktsiinide manustamist hingamisteede kaudu-2
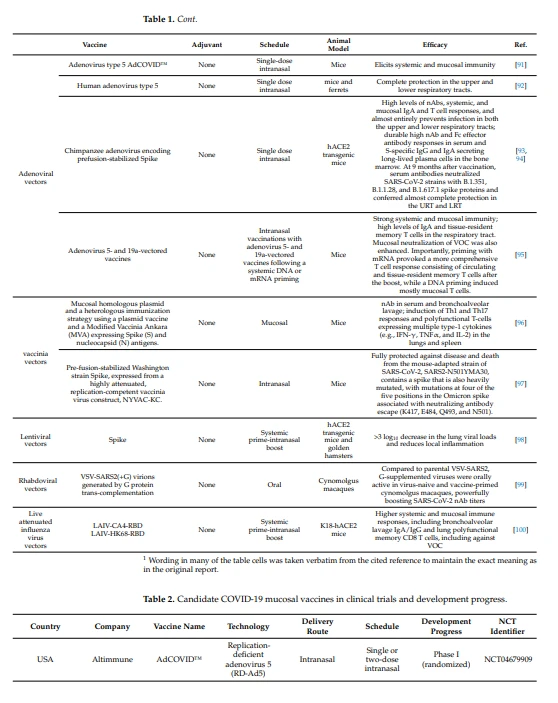
Seotud koronaviiruste SARS-CoV [60–70] ja MERSCoV [60, 71–74] loommudelid näitavad, et limaskestade vaktsineerimine kutsub esile pikaajalise süsteemse ja limaskestade immuunsuse. Närilistega (hiired, kuldhamstrid ja tuhkrud) tehtud uuringute prekliinilised tõendid on olnud sarnaselt positiivsed SARS-CoV-2 suhtes (vaadatud [23,75–79] ja kokkuvõte tabelis 1), hoiatusega, et paljud uuringuid ei ole veel eelretsenseeritud. 14. detsembri 2021. aasta seisuga on kliiniliste uuringute esimesse faasi jõudnud vähemalt 14 limaskesta vaktsiini (tabel 2) ja mitmed võivad turule tulla 2022. aastal.
Muud kui intramuskulaarsed manustamisviisid võivad viia antigeeniannuse säästmiseni, mis võib olla oluline pandeemiate ajal tootmise kitsaskohtade leevendamisel. Kuigi see on tõestatud subkutaanse manustamise puhul [80], ei ole see ametlikult tõestatud limaskestade manustamise puhul.
Kuigi meil puuduvad ametlikud uuringud suukaudsete või inhaleeritavate vaktsiinide tõhususe kohta inimestel, kellel puuduvad limaskesta immuunsüsteemi osad (nt lapsed pärast adenoidide ja mandlite eemaldamist [81] või pärast apendektoomiat), tundub mõistlik eeldada, et allesjäänud limaskesta immuunsüsteemist piisab, et kutsuda esile reaktsioon tõsiasjast, et puuduvad ajaloolised andmed selle kohta, et need isikud oleksid pärast muud tüüpi vaktsiinide saamist vastuvõtlikumad.


7. Immuunsuse steriliseerimine ja SARS-CoV-2 virulentsuse tulevik
Steriliseerivat immuunsust mitte esile kutsuva vaktsiini puhul eeldatakse, et pidev edasikandumine hõlbustab nõrgestamist inimperemeestele, kuigi kogemused selliste "lekkivate" vaktsiinidega põllumajandusloomade puhul ei ole olnud veenvad. Näiteks Mareki haiguse viiruse (MDV) kasutamisel kanadel võivad mittesteriliseerivad vaktsiinid suurendada [104] või vähendada [105] virulentsust. Üldiselt, mida rohkem viirus ringleb, seda parem peaks olema tema kohanemine peremeesorganismiga. Evolutsioonilised mudelid viitavad sellele, et virulentsuse ja transmissiivsuse vaheline kompromiss maksimeerib patogeeni sobivust, vähendades samal ajal virulentsust, kuid pole selge, kas see on universaalne nähtus kõigi viiruste jaoks [106]. Palju sõltub virulentsuse ja edasikanduvuse vahelisest seosest ning kõnealuse mikroobi virulentsuse maksumusest [107].
Organismide puhul, mis vajavad uuele peremehele ülekandmiseks virulentsust, on patogeensusvõime nende ellujäämiseks hädavajalik ja nõrgenemist ei tohiks tingimata oodata [107]). SARS-CoV-2 puhul teame juba, et asümptomaatiline levik on võimalik, mis tähendab, et virulentsus ei ole edasikandumise seisukohalt oluline. Sumbumise kiirus (aastakümned kuni miljonid aastad) tuleneb sellistest muutujatest nagu letaalsus ja ülekande efektiivsus, mistõttu on võimatu ennustada. Kuigi nõrgenemine inimeste seas ei ole tsirkulatsiooniga universaalne trajektoor, on minevikus paljud hingamisteede viirused aja jooksul spontaanselt nõrgenenud, sealhulgas koroonaviirused (nt OC-43, mis arenes välja 1885–1894 Vene gripipandeemia põhjustajast [108] praegu tavalist grippi põhjustavale viirusele). Tõendid inimese viiruste kerge spontaanse nõrgenemise kohta pärinevad ka rohkematest RNA viirustest (nt gripiviirus A(H1N1) [109 110], dengue viiruse tüüp 2 [111] ja ebolaviirus HIV-lt [112 113], kuigi sellised patogeenid on kaugel on avirulentne. Käimasolev SARS-CoV-2 pandeemia oli enneolematu võimalus jälgida reproduktiivarvu (Rt) reaalajas ja me täheldasime tõusu 1,2-lt algse Wuhani tüve puhul 4,0-ni praeguse Delta-plus'i puhul. probleemne variant (VOC) [114]: teisisõnu, virulentsemad ja vähem levivad variandid asendusid kiiresti ülekandvamate ja vähem virulentsete variantidega.
Praegu on arenemisprotsess käimas, rohkem kui 170 Delta alamliini konkureerivad üksteisega [115] ja hiljuti teatati teisest lenduvast orgaanilisest ühendist, nimega Omicron [116 117]. Arvestades nõrgestatud SARS-CoV-2 tüvede kasvavat levikut asümptomaatiliselt kandjatelt lukustusperioodide ajal, on oletatud, et nõrgestatud SARS-CoV-2 tüvede konkurents nõrgestatud tüvedega aitab kaasa üldise virulentsuse vähendamisele [ 118]. Nõrgestatud viirustüved on olnud immuniseerimiskampaaniate tugisambaks aastakümneid ja nende kavandatud ringlust ei tohiks alahinnata.
Teisest küljest kaasneb inimestel steriliseerivat immuunsust põhjustavate vaktsiinidega täiendav oht vältida spontaanset nõrgenemist, peatades viiruse replikatsiooni ja evolutsiooni, tõugates viiruse loomade reservuaaridesse, kus see jääb zoonoosiks koos võimalusega uuesti sattuda inimpopulatsioonidesse koos selle teisenditega. suurenenud haigestumus ja letaalsus (tagasi kohanemine). SARS-CoV-2 on panzootiline viirus ja huvipakkuv on see, et kõik neli praegust lenduvat orgaanilist ühendit suudavad täielikult ületada hiirte ACE2 varasema Spike'i piirangu ning tänu üksikutele lenduvatele orgaanilistele ühenditele on suurem afiinsus roti, tuhkru ja tsibeti ACE2 retseptorite suhtes. N501Y ja E484K asendustele Spike'i veekogus.
Sellegipoolest kaasneb suurenenud vereringega tõsine oht, et nõrgestatud sugupuu muutub virulentsemaks üksikute nukleotiidide mutatsioonide, deletsioonide või rekombinatsiooni kaudu. Mitmel koroonaviiruse alamperekonnal on kalduvus rekombineerida madala GC genoomi piirkondades, mittekodeerivates piirkondades, geenide servades ja mittehävitavates Spike saitides [119]. SARS-CoV-2 puhul on juba ringluses kaks rekombinantset liini (XA ja XB).
Lisaks on RNA viirused väga altid mutatsioonidele, jättes need kokku niinimetatud "letaalsele mutageneesile" [120], mis väidetavalt põhjustas SARS-CoV-1 [121] äkilise kadumise. SARS-CoV-2 puhul on seda hüpoteesi hiljuti kasutatud delta lenduvate orgaaniliste ühendite esinemissageduse järsu vähenemise selgitamiseks Jaapanis [114], kuid alternatiivseks seletuseks on konkurents sobivamate alamliinide poolt. Seega on nii steriliseerivatel kui ka mittesteriliseerivatel vaktsiinidel tõenäoliselt suur mõju SARS-CoV{10}} virulentsuse arengule inimeste jaoks, mis võib kujutada endast uusi väljakutseid tulevikus, kuna inimkond seisab jätkuvalt selle viiruse ohuga silmitsi.
8. Vaktsiinile mittereageerivate inimeste väljakutse
Nagu iga sotsiaalse vajaduse puhul, on sageli vaja kompromissi haavatavate inimeste rahuldamata vajaduste ja immuunkompetentse elanikkonna üldise turvalisuse vahel. Kehv vaktsiinivastus, mis püsib ka pärast kolme annust, on immuunpuudulikkusega patsientide jaoks endiselt tõsine probleem [122]. Need isikud on endiselt nakatumise ja haiguste ohus ning moodustavad märkimisväärse populatsiooni, arvestades kaasaegse meditsiini edukust paljude onkoloogiliste ja reumatoloogiliste seisundite ravimisel immuunsust kahjustavate ravimeetoditega. Seetõttu raskendab vaktsiinile mittereageerivate immuunsupressiivsete isikute probleem tõenäoliselt kõik pandeemia ohjeldamise või lõpetamise püüdlused, kuna need peremehed jäävad SARS-CoV-2 suhtes haavatavaks ja viirust pikka aega replitseerides esindavad ideaalne maastik viiruste variantide tekkeks. Passiivse immunoteraapiaga profülaktika on tänapäeval teostatav sc monoklonaalsete antikehade kokteilide (kaasa arvatud pika toimeajaga antikehad), im-hüperimmuunseerumi või iv taastuva plasmaga. Kuigi RCT-d on käimas, on sellise kokkupuuteeelse profülaktika tõhususe loomine tohutult põhjendatud.

9. Kas süsteemsed COVID-19 vaktsiinid on lihtsalt "isekad" vaktsiinid?
Üldajakirjandus tunnistab süsteemseid vaktsiine, mis ei suuda tagada karja immuunsust, "isekateks", st neid peetakse kasulikeks ainult vaktsineeritule endale, kes on säästetud rasketest haigustest. Arvestades COVID{0}} suremuse ja haigestumuse vähenemise ning haiglate ummistumise ilmset sotsiaalset kasu, on see väär arusaam, süsteemsete vaktsiinide eelised ulatuvad palju kaugemale kui COVID{1}} haiguse leevendamine.
Näiteks viiruse leviku lühem kestus NPS-is (hoolimata tippkoormusest, mis on suuresti sarnane vaktsineerimata juhtudega) vähendab kogukonna levikut ja vähendab peremeesorganismisiseste mutatsioonide tõenäosust. Laiemas perspektiivis on SARS-CoV-2 liinide heterogeensus pöördvõrdelises korrelatsioonis vaktsineerimise kiirusega (see on konkreetselt näidatud Delta lenduvate orgaaniliste ühendite puhul individuaalses perspektiivis, vaktsiini läbimurde patsientidest kogutud viirusisolaadid näitavad 2.{{ 4}} korda väiksem teadaolevate SARS-CoV-2 B-raku epitoopide mitmekesisus võrreldes vaktsineerimata COVID-19 patsientidega [123]. Seega võivad vaktsiinid juba bioloogiliselt kahjustada viiruse sobivust, vähendades selle geneetiline mitmekesisus.
10. Järeldused
Vaktsiinid on endiselt parim lootus COVID{0}} pandeemia lõpetamisel ja suremuse vähendamisel. Mitme tõhusa vaktsiini väljatöötamine pandeemia esimese aasta jooksul oli märkimisväärne saavutus. Limaskesta vaktsiinid ei olnud SARS-CoV-2 puhul esmane/esimene lähenemine, sest pandeemia alguses oli meil vähe teadmisi selle kohta, kuidas immuunsuse steriliseerimine koroonaviiruste vastu töötab.
Sellegipoolest ei suuda vaktsiinid, mis kutsuvad esile süsteemse immuunsuse ilma limaskesta immuunsuseta, pandeemiat tõenäoliselt lõpetama, kuna need hoiavad ära haigusi, mitte nakatumist, ning iga nakatumisjuhtum hõlmab viiruse replikatsiooni koos võimalusega vaktsiiniresistentsete variantide tekkeks. Iga inimese ennetav või terapeutiline sekkumine patogeeni vastu tekitab selektiivset survet, mis võib viia põgenemisvariantide tekkeni [124] ja vaktsiinid pole erandiks. See võib kehtida nii suguvõsadevahelise konkurentsi kui ka vaktsiinisisese evolutsiooni kiirendamise kohta. Olukord COVID-iga-19 nõuab vaktsiinide väljatöötamise jätkamist ja arvestades SARS-CoV-ga kaasneva ülemaailmse katastroofi ulatust{5}}, eeldame vajadust uue põlvkonna vaktsiinide järele ja nende väljatöötamist. kutsuvad esile limaskesta immuunsuse mitme viiruse antigeeni vastu. Täiendavad uuringud, mis kombineerivad vaktsineerimisjärgset jälgimist ja SARS-CoV{8}}positiivsete juhtude geneetilist järjestust, on õigustatud, et selgitada välja viiruse loomuliku evolutsiooni muutmise mõju vaktsineerimiskampaaniatega.
Rahastamine:
See uuring ei saanud välist rahastamist.
Institutsioonilise ülevaatenõukogu avaldus:
Ei kohaldata.
Teadliku nõusoleku avaldus:
Ei kohaldata.
Andmete kättesaadavuse avaldus:
Andmed on saadaval avalikult ligipääsetavas hoidlas.

Huvide konfliktid:
DF sai Novavaxilt nõuandekogu eest tasu. Teised autorid ei kinnita, et selle käsikirjaga seotud huvide konflikt ei ole.
Viited
1. Ewer, KJ; Barrett, JR; Belij-Rammerstorfer, S.; Sharpe, H.; Makinson, R.; Morter, R.; Flaxman, A.; Wright, D.; Bellamy, D.; Bittaye, M.; et al. ChAdOx1 nCoV-19 (AZD1222) ühekordse annusega indutseeritud T-rakkude ja antikehade vastused kliinilises faasis 1/2. Nat. Med. 2021, 27, 270–278. [CrossRef]
2. Hart, TK; Kokk, RM; Zia-Amirhosseini, P.; Minthorn, E.; Müüjad, TS; Maleeff, BE; Eustis, S.; Schwartz, LW; Tsui, P.; Appelbaum, ER; et al. Mepolisumabi (SB-240563), humaniseeritud monoklonaalse IL-5-vastase antikeha, prekliiniline efektiivsus ja ohutus cynomolgus-ahvidel. J. Allergy Clin. Immunol. 2001, 108, 250–257. [CrossRef]
3. Peebles, RS, Jr.; Liu, MC; Lichtenstein, LM; Hamiltoni, RG IgA, IgG ja IgM kvantifitseerimine allergilise riniidi, allergiliste astmaatikute ja normaalsete isikute bronhoalveolaarsetes loputusvedelikes monoklonaalsetel antikehadel põhinevate immunoensüümianalüüsidega. J. Immunol. Methods 1995, 179, 77–86. [CrossRef]
4. Wu, H.; Pfarr, DS; Johnson, S.; Brewah, YA; Woods, RM; Patel, NK; Valge, WI; Young, JF; Kiener, PA Motavisumabi, ülitugeva antikeha väljatöötamine respiratoorse süntsütiaalviiruse infektsiooni ennetamiseks ülemistes ja alumistes hingamisteedes. J. Mol. Biol. 2007, 368, 652–665. [CrossRef]
5. Borrok, MJ; DiGiandomenico, A.; Beyaz, N.; Marchetti, GM; Barnes, AS; Lekstrom, KJ; Phipps, SS; McCarthy, parlamendiliige; Wu, H.; Dall'Acqua, WF; et al. IgG jaotumise suurendamine kopsu limaskesta kudedesse parandab pseudomonas aeruginosa vastaste antikehade kaitsvat toimet. JCI Insight 2018, 3, e97844. [CrossRef] [PubMed]
6. Klaver Mortari, E.; Russo, C.; Vinci, MR; Terreri, S.; Fernandez Salinas, A.; Piccioni, L.; Alteri, C.; Colagrossi, L.; Coltella, L.; Ranno, S.; et al. Väga spetsiifiline mälu B-rakkude teke pärast BNT162b2 vaktsiini teist annust kompenseerib seerumi antikehade vähenemise ja limaskesta IgA puudumise. Cells 2021, 10, 2541. [CrossRef] [PubMed]
7. Oran, D.; Topol, E. Asümptomaatiliste SARS-CoV-2 nakkuste osakaal. Ann. Intern. Med. 2021, 174, 1344–1345. [CrossRef] [PubMed]
8. Novazzi, F.; Taborelli, S.; Baj, A.; Focosi, D.; Maggi, F. Asümptomaatilised SARS-CoV-2 vaktsiini läbimurdelised infektsioonid tervishoiutöötajatel, mis tuvastati rutiinsete universaalsete seiretestidega. Ann. Intern. Med. 2021, 174, 1770–1772. [CrossRef] [PubMed]
9. Kennedy-Shaffer, L.; Kahn, R.; Lipsitch, M. Vaktsiini efektiivsuse hindamine viiruse ülekandumise vastu mõju kaudu viiruskoormusele. Epidemioloogia 2021, 32, 820–828. [CrossRef]
10. Zhou, D.; Chan, JF-W.; Zhou, B.; Zhou, R.; Li, S.; Shan, S.; Liu, L.; Zhang, AJ; Chen, SJ; Chan, CC-S.; et al. Tugev SARS-CoV-2 infektsioon ninaõõnes pärast töötlemist süsteemsete neutraliseerivate antikehadega. Peremeesraku mikroob 2021, 29, 551–563.e555. [CrossRef] [PubMed]
11. Halwe, S.; Kupke, A.; Vanshylla, K.; Liberta, F.; Gruell, H.; Zehner, M.; Rohde, C.; Kraehling, V.; Gellhorn-Serra, M.; Kreer, C.; et al. Monoklonaalse neutraliseeriva antikeha intranasaalne manustamine kaitseb hiiri SARS-CoV-2 nakkuse eest. Viirused 2021, 13, 1498. [CrossRef]
12. Casadevall, A.; Pirofski, LA peremeesorganismi ja patogeeni interaktsioonid: virulentsuse ja patogeensuse põhimõistete ümberdefineerimine. Nakata. Immun. 1999, 67, 3703–3713. [CrossRef]
13. Robbins, JB; Schneerson, R.; Szu, SC Perspektiiv: Hüpotees: seerumi IgG antikehad on piisavad, et tagada kaitse nakkushaiguste eest, inaktiveerides inokulaadi. J. Infect. Dis. 1995, 171, 1387–1398. [CrossRef]
14. Ahn, JH; Kim, J.; Hong, SP; Choi, SY; Yang, MJ; Ju, YS; Kim, YT; Kim, HM; Rahman, MDT; Chung, MK; et al. Nina ripsmelised rakud on SARS-CoV-2 replikatsiooni peamised sihtmärgid COVID-19 varases staadiumis. J. Clin. Uurige. 2021, 131, e148517. [CrossRef]
15. Rebane, A.; Marino, J.; Amanat, F.; Krammer, F.; Hahn-Holbrook, J.; Zolla-Pazner, S.; Powell, RL Inimese piimas tuvastatud tugev ja spetsiifiline sekretoorne IgA SARS-CoV-2 vastu. iScience 2020, 23, 101735. [CrossRef] [PubMed]
16. Demers-Mathieu, V.; Tee, DM; Mathijssen, Suurbritannia; Sela, DA; Seppo, A.; Järvinen, KM; Medo, E. SARS-CoV-2 S1 ja S2 subühikute ja nukleokapsiidvalguga reaktiivsete SIgM/IgM, IgG ja SIgA/IgA antikehade taseme erinevus inimese rinnapiimas. J. Perinatol. Väljas. J. California, Perinat. Assoc. 2020, 1, 1–10. [CrossRef]
17. Tsukinoki, K.; Yamamoto, T.; Handa, K.; Iwamiya, M.; Ino, S.; Sakurai, T. Ristreaktiivse IgA tuvastamine süljes SARS-CoV-2 Spike1 subühiku vastu. PLoS ONE 2021, 16, e0249979. [CrossRef] [PubMed]
18. Kadiyala, G.; Iyer, S.; Meher, K.; Vangala, S.; Chandran, S.; Saxena, U. Neelatavate antikehade valmistamine SarsCoV2 RBD (retseptori sidumisdomeeni) seondumise neutraliseerimiseks inimese ACE2 retseptoriga. bioRxiv 2021. [CrossRef]
19. Frumkin, LR; Lucas, M.; Scribner, CL; Ortega-Heinly, N.; Rogers, J.; Yin, G.; Hallam, TJ; Yam, A.; Bedard, K.; Begley, R.; et al. Munast saadud SARS-CoV-2-vastane immunoglobuliin Y (IgY), millel on laialdane aktiivsus COVID-i intranasaalseks profülaktikaks-19: prekliinilised uuringud ja randomiseeritud kontrollitud 1. faasi kliiniline uuring. medRxiv 2022. [CrossRef]
20. Power, M.; Azad, T.; Bell, JC; MacLean, A. SARS-CoV-2 antigeenide taimepõhine ekspressioon suukaudses vaktsiinis kasutamiseks. bioRxiv 2021. [CrossRef]
21. Li, C.; Zhan, W.; Yang, Z.; Tu, C.; Zhu, Y.; Song, W.; Huang, K.; Gu, X.; Kong, Y.; Zhang, X.; et al. SARS-CoV-2 variantide ulatuslik neutraliseerimine inhaleeritava bispetsiifilise ühedomeenilise antikehaga. bioRxiv 2021. [CrossRef]
22. Yusuf, H.; Kett, V. Ninavaktsiini manustamise praegused väljavaated ja tuleviku väljakutsed. Humm. Vaktsiinid Immunother. 2017, 13, 34–45. [CrossRef] [PubMed]
23. Heida, R.; Hinrichs, WL; Frijlink, HW Sissehingatava vaktsiini manustamine võitluses hingamisteede viiruste vastu: 2021. aasta ülevaade hiljutistest arengutest ja mõjudest COVID-ile-19. Expert Rev. Vaccines 2021, 1–18. [CrossRef]
24. Jhaveri, R.; Allyne, K. Teostatavuskatse intranasaalse vaktsiini koduse manustamise kohta vanemate poolt abikõlblikele lastele. Clin. Seal. 2017, 39, 204–211. [CrossRef] [PubMed] 25. Bandyopadhyay, AS; Garon, J.; Seib, K.; Orenstein, WA Poliomüeliidi vaktsineerimine: minevik, olevik ja tulevik. Tuleviku mikrobiol. 2015, 10, 791–808. [CrossRef] [PubMed]
26. Jain, S.; P, B.; Singh, S.; Singla, A.; Kundu, H.; Singh, K. Poliomüeliidi likvideerimise õppetunnid mineviku ja tuleviku vaatenurgast. J. Clin. Diagnoos. Res. JCDR 2014, 8, Zc56–Zc60. [CrossRef]
27. Kirkwood, CD; Ma, LF; Carey, MINA; Steele, AD Rotaviiruse vaktsiini väljatöötamise torujuhe. Vaktsiin 2019, 37, 7328–7335. [CrossRef]
28. Klaas, RI; Parashar, UD; Bresee, JS; Turcios, R.; Fischer, TK; Widdowson, MA; Jiang, B.; Gentsch, JR rotaviiruse vaktsiinid: praegused väljavaated ja tulevased väljakutsed. Lancet 2006, 368, 323–332. [CrossRef]
29. Carter, NJ; Curran, MP Reaalajas nõrgestatud gripivaktsiin (FluMist®; Fluenz™): ülevaade selle kasutamisest hooajalise gripi ennetamisel lastel ja täiskasvanutel. Narkootikumid 2011, 71, 1591–1622. [CrossRef]
30. vatti, PJ; Smith, A. Ravimite ja vaktsiinide ümberformuleerimine intranasaalseks manustamiseks: maksimaalne kasu minimaalse riskiga? Drug Discov. Täna 2011, 16, 4–7. [CrossRef]
31. Top, FH, Jr.; Grossman, RA; Bartelloni, PJ; Segal, HE; Dudding, BA; Russell, PK; Buescher, EL Immuniseerimine 7. ja 4. tüüpi adenoviiruse elusvaktsiinidega. I. Adenoviiruse tüüp 7 vaktsiini ohutus, nakkavus, antigeensus ja tugevus inimestel. J. Infect. Dis. 1971, 124, 148–154. [CrossRef] [PubMed]
32. Top, FH, Jr.; Dudding, BA; Russell, PK; Buescher, EL Hingamisteede haiguste kontroll värvatud 4. ja 7. tüüpi adenoviiruse vaktsiinidega. Olen. J. Epidemiol. 1971, 94, 142–146. [CrossRef]
33. Kuschner, RA; Russell, KL; Abuja, M.; Bauer, KM; Faix, DJ; Hait, H.; Henrick, J.; Jacobs, M.; Liss, A.; Lynch, JA; et al. 3. faasi randomiseeritud topeltpime platseebokontrollitud uuring suukaudse 4. ja 7. tüüpi adenoviiruse elusvaktsiini ohutuse ja efektiivsuse kohta USA sõjaväelaste seas. Vaktsiin 2013, 31, 2963–2971. [CrossRef] [PubMed]
34. Lyons, A.; Longfield, J.; Kuschner, R.; Sirge, T.; Binn, L.; Seriwatana, J.; Reitstetter, R.; Froh, IB; Käsitöö, D.; McNabb, K.; et al. Topeltpime, platseebokontrollitud uuring elusate, suukaudsete 4. ja 7. tüüpi adenoviiruse vaktsiinide ohutuse ja immunogeensuse kohta täiskasvanutel. Vaktsiin 2008, 26, 2890–2898. [CrossRef]
35. Choudhry, A.; Mathena, J.; Albano, JD; Yacovone, M.; Collins, L. Adenoviiruse 4. ja 7. tüüpi elusvaktsiini ohutuse hindamine, suukaudne sõjaväelastel. Vaktsiin 2016, 34, 4558–4564. [CrossRef]
36. Gaydos, CA; Gaydos, JC adenoviiruse vaktsiinid USA sõjaväes. Mil. Med. 1995, 160, 300–304. [CrossRef]
37. Hilleman, MR; Stallones, RA; Gauld, RL; Warfield, MS; Anderson, SA Vaktsineerimine adenoviiruse (RI-APC-ARD) etioloogiaga ägeda respiratoorse haiguse vastu. Olen. J. Rahvatervise rahvatervis 1957, 47, 841–847. [CrossRef] [PubMed]
38. Collins, ND; Adhikari, A.; Yang, Y.; Kuschner, RA; Karasavvas, N.; Binn, LN; Seinad, SD; Graf, PCF; Myers, CA; Jarman, RG; et al. Elus suukaudne 4. ja 7. tüüpi adenoviiruse vaktsiin kutsub esile püsiva antikehavastuse. Vaktsiinid 2020, 8, 411. [CrossRef] [PubMed]
39. Gasser, R.; Cloutier, M.; Prevost, J.; Fink, C.; Ducas, E.; Ding, S.; Dussault, N.; Landry, P.; Tremblay, T.; Laforce-Lavoie, A.; et al. IgM-i peamine roll taastuva plasma neutraliseerimisel SARS-CoV-2 vastu. Cell Rep. 2020, 34, 108790. [CrossRef] [PubMed]
40. Verkerke, H.; Saeedi, BJ; Boyer, D.; Allen, JW; Owens, J.; Shin, S.; Horwath, M.; Patel, K.; Paul, A.; Wu, SC; et al. Kas me unustame IgA? Koronaviirushaiguse 2019. aasta taastusplasma kordusuuring. Transfusioon 2021, 61, 1740–1748. [CrossRef] [PubMed]
41. den Hartog, G.; Vos, ERA; van den Hoogen, LL; van Boven, M.; Schepp, RM; Smits, G.; van Vliet, J.; Woudstra, L.; WijmengaMonsuur, AJ; van Hagen, CCE; et al. SARS-CoV-2 vastaste antikehade püsimine sümptomite kohta üleriigilises perspektiivuuringus. Clin. Nakata. Dis. 2021, 73, 2155–2162. [CrossRef]
42. Klingler, J.; Weiss, S.; Itri, V.; Liu, X.; Oguntuyo, KY; Stevens, C.; Ikegame, S.; Hung, C.-T.; Enyindah-Asonye, G.; Amanat, F.; et al. IgM ja IgA antikehade roll SARS-CoV neutraliseerimisel-2. J. Infect. Dis. 2020, 223, 957–970. [CrossRef]
43. Sterlin, D.; Mathian, A.; Miyara, M.; Mohr, A.; Anna, F.; Clarer, L.; Quentric, P.; Fadlallah, J.; Ghillani, P.; Gunn, C.; et al. IgA domineerib SARS-CoV-2 varajases neutraliseerivas antikehavastuses. Sci. Tõlk. Med. 2021, 13, 2223. [CrossRef] [PubMed]
44. Wang, Z.; Lorenzi, JCC; Muecksch, F.; Finkin, S.; Viant, C.; Gaebler, C.; Cipolla, M.; Hoffmann, HH; Oliveira, TY; Oren, DA; et al. Täiustatud SARS-CoV-2 neutraliseerimine dimeerse IgA abil. Sci. Tõlk. Med. 2021, 13, eabf1555. [CrossRef] [PubMed]
45. Cervia, C.; Nilsson, J.; Zurbuchen, Y.; Valaperti, A.; Schreiner, J.; Wolfensberger, A.; Raeber, MINA; Adamo, S.; Weigang, S.; Emmenegger, M.; et al. SARS-CoV-le spetsiifilised süsteemsed ja limaskestade antikehareaktsioonid-2 kerge või raske COVID-i-19 ajal. J. Allergy Clin. Immunol. 2020, 147, 545–557.e549. [CrossRef] [PubMed]
46. Rebane, A.; Marino, J.; Amanat, F.; Oguntuyo, K.; Hahn-Holbrook, J.; Lee, B.; Krammer, F.; Zolla-Pazner, S.; Powell, RL Pärast SARS-CoV-2 infektsiooni tavaliselt esile kutsutud piim-spetsiifiline IgA on samaaegne tugeva sekretoorse antikeha vastusega, sellel on neutraliseerimisvõime, mis on tugevas korrelatsioonis IgA seondumisega ja on aja jooksul väga vastupidav. medRxiv 2021. [CrossRef]
47. Ketas, TJ; Chaturbhuj, D.; Cruz-Portillo, VM; Francomano, E.; Golden, E.; Chandrasekhar, S.; Debnath, G.; Diaz-Tapia, R.; Yasmeen, A.; Leconet, W.; et al. Antikehade vastused SARS-CoV-2 mRNA vaktsiinidele on tuvastatavad süljes. Patog. Immun. 2021, 6, 116–134. [CrossRef]
48. Wisnewski, AV; Campillo-Luna, J.; Redlich, CA inimese IgG ja IgA vastused COVID-19 mRNA vaktsiinidele. PLoS ONE 2021, 16, e0249499. [CrossRef]
49. Baird, JK; Jensen, SM; Urba, WJ; Fox, BA; Baird, JR SARS-CoV-2 antikehad tuvastati pärast vaktsineerimist emapiimas. J. Hum. Lakt. 2021, 37, 492–498. [CrossRef]
50. Grey, KJ; Bordt, EA; Atyeo, C.; Deriso, E.; Akinwunmi, B.; Young, N.; Baez, AM; Shaok, LL; Cvrk, D.; James, K.; et al. COVID-19 vaktsiinivastus rasedatel ja imetavatel naistel: kohortuuring. Olen. J. Obstet. Gynecol. 2021, 225, 303.e301–303.e317. [CrossRef]
51. Andersson, MI; Arancibia-Carcamo, CV; Auckland, K.; Baillie, JK; Barnes, E.; Beneke, T.; Bibi, S.; Brooks, T.; Carroll, M.; Crook, D.; et al. COVID-19-ga patsientide veretoodetes tuvastatud SARS-CoV-2 RNA ei ole seotud nakkusliku viirusega. Tere tulemast Open Res. 2020, 5, 181. [CrossRef]
52. Despres, HW; Mills, MG; Shirley, DJ; Schmidt, MM; Huang, M.-L.; Jerome, KR; Greninger, AL; Bruce, EA Nakkusliku viiruse kvantitatiivne mõõtmine SARS-CoV-2 Alpha, Delta ja Epsilon variantides näitab Delta ja Epsiloni variante sisaldavates kliinilistes proovides suuremat nakkavust (viiruse tiitri: RNA suhe). medRxiv 2021. [CrossRef]
53. Ke, R.; Martinez, PP; Smith, RL; Gibson, LL; Achenbach, CJ; McFall, S.; Qi, C.; Jacob, J.; Dembele, E.; Bundy, C.; et al. SARS-CoV-2 vaktsiini läbimurdeliste infektsioonide pikisuunaline analüüs näitab piiratud nakkusliku viiruse levikut ja piiratud kudede levikut. medRxiv 2021. [CrossRef]
54. Puhach, O.; Adea, K.; Hulo, N.; Sattonnet-Roche, P.; Genecand, C.; Iten, A.; Jacquerioz Bausch, F.; Kaiser, L.; Vetter, P.; Eckerle, I.; et al. Nakkuslik viiruskoormus SARS-CoV-2 WT, Delta ja Omicroniga nakatunud vaktsineerimata ja vaktsineeritud patsientidel. medRxiv 2022. [CrossRef]
55. Singanayagam, A.; Hakki, S.; Dunning, J.; Madon, KJ; Crone, MA; Koycheva, A.; Derqui-Fernandez, N.; Barnett, JL; Whitfield, MG; Varro, R.; et al. SARS-CoV-2 delta (B.1.617.2) variandi kogukonna leviku ja viiruskoormuse kineetika vaktsineeritud ja vaktsineerimata isikutel Ühendkuningriigis: prospektiivne pikisuunaline kohortuuring. Lancet Infect. Dis. 2021. [CrossRef]
56. Baj, A.; Novazzi, F.; Genoni, A.; Ferrante, FD; Taborelli, S.; Pini, B.; Partenope, M.; Valli, M.; Gasperina, DD; Capuano, R.; et al. Sümptomaatilised SARS-CoV-2 infektsioonid pärast täielikku ajakava BNT162b2 vaktsineerimist seropositiivsetel tervishoiutöötajatel: haigusjuhtude seeria ühest asutusest. Tekkima. Mikroobid nakatavad. 2021, 10, 1254–1256. [CrossRef] [PubMed]
57. Bleier, BS; Ramanathan, M., Jr.; Lane, AP COVID-19 vaktsiinid ei pruugi ära hoida nasaalset SARS-CoV-2 infektsiooni ja asümptomaatilist edasikandumist. Otolaryngool. Pea Kael Surg. Väljas. J. Am. Acad. Otolaryngool. Pea Kael Surg. 2021, 164, 305–307. [CrossRef] [PubMed]
58. Chan, RWY; Liu, S.; Cheung, JY; Tsun, JGS; Chan, KC; Chan, KYY; seen, GPG; Li, AM; Lam, HS Limaskesta ja seroloogilised immuunvastused uudse koroonaviiruse (SARS-CoV-2) vaktsiinidele. Ees. Immunol. 2021, 12, 744887. [CrossRef] [PubMed]
59. Rosenberg-Friedman, M.; Kigel, A.; Bahar, Y.; Werbner, M.; Alter, J.; Yogev, Y.; Dror, Y.; Lubetzky, R.; Dessau, M.; Gal-Tanamy, M.; et al. BNT162b2 mRNA vaktsiini poolt esile kutsutud antikehavastus rinnaga toitvate naiste veres ja piimas. Nat. Commun. 2021, 12, 6222. [CrossRef]
60. Zhao, J.; Zhao, J.; Mangalam, AK; Channappanavar, R.; Fett, C.; Meyerholz, DK; Agnihothram, S.; Baric, RS; David, CS; Perlman, S. Hingamisteede mälu CD4 (pluss) T-rakud vahendavad kaitsvat immuunsust tekkivate hingamisteede koronaviiruste vastu. Immunity 2016, 44, 1379–1391. [CrossRef] [PubMed]
61. Shim, BS; Stadler, K.; Nguyen, HH; Yun, CH; Kim, DW; Chang, J.; Czerkinsky, C.; Song, MK Keelealune immuniseerimine rekombinantse adenoviirusega, mis kodeerib SARS-CoV spike valku, kutsub esile süsteemse ja limaskesta immuunsuse ilma viiruse ajju suunamiseta. Virol. J. 2012, 9, 215. [CrossRef] [PubMed]
62. Raghuwanshi, D.; Mišra, V.; Das, D.; Kaur, K.; Suresh, MR Dendritic rakkudele suunatud kitosaani nanoosakesed nasaalse DNA immuniseerimiseks SARS-CoV nukleokapsiidi valgu vastu. Mol. Pharm. 2012, 9, 946–956. [CrossRef] [PubMed]
63. Gai, WW; Zhang, Y.; Zhou, DH; Chen, YQ; Yang, JY; Yan, HM PIKA pakub adjuvantefekti tugeva limaskesta ja süsteemse humoraalse immuunsuse esilekutsumiseks SARS-CoV vastu. Virol. Patt. 2011, 26, 81–94. [CrossRef]
64. Lu, B.; Huang, Y.; Huang, L.; Li, B.; Zheng, Z.; Chen, Z.; Chen, J.; Hu, Q.; Wang, H. Limaskesta ja süsteemse immuniseerimise mõju raske ägeda respiratoorse sündroomi koroonaviiruse viiruslike osakestega hiirtel. Immunology 2010, 130, 254–261. [CrossRef] 65. Shim, BS; Park, SM; Quan, JS; Jere, D.; Chu, H.; Laul, MK; Kim, DW; Jang, YS; Yang, MS; Han, SH; et al. Intranasaalne immuniseerimine plasmiidse DNA-ga, mis kodeerib SARS-koronaviiruse / polüetüleen-imiin nanoosakeste piigivalku, kutsub esile antigeenispetsiifilised humoraalsed ja rakulised immuunvastused. BMC Immunol. 2010, 11,
65. [CrossRef]
66. Huang, X.; Lu, B.; Yu, W.; Fang, Q.; Liu, L.; Zhuang, K.; Shen, T.; Wang, H.; Tian, P.; Zhang, L.; et al. Uudne replikatsioonikompetentne vaktsiiniavektor MVTT on MVA-st parem, kuna indutseerib limaskestade vaktsineerimise kaudu neutraliseerivate antikehade kõrget taset. PLoS ONE 2009, 4, e4180. [CrossRef]
67. Schulze, K.; Staib, C.; Schätzl, HM; Ebensen, T.; Erfle, V.; Guzman, CA Prime-boost vaktsineerimise protokoll optimeerib immuunvastuseid SARS-i koroonaviiruse nukleokapsiidi valgu vastu. Vaktsiin 2008, 26, 6678–6684. [CrossRef]
68. Du, L.; Zhao, G.; Lin, Y.; Sui, H.; Chan, C.; Ma, S.; Tema, Y.; Jiang, S.; Wu, C.; Yuen, KY; et al. Raske ägeda respiratoorse sündroomi koronaviiruse (SARS-CoV) valgu retseptoriga seonduvat domeeni kodeeriva rekombinantse adeno-seotud viiruse intranasaalne vaktsineerimine kutsub esile limaskesta tugeva immuunvastuse ja tagab pikaajalise kaitse SARS-CoV infektsiooni vastu. J. Immunol. 2008, 180, 948–956. [CrossRef]
69. Hu, MC; Jones, T.; Kenney, RT; Barnard, DL; Burt, DS; Lowell, GH Intranasaalne Protolliiniga formuleeritud rekombinantne SARS S-valk kutsub hiirtel esile hingamiselundeid ja seerumit neutraliseerivad antikehad ning kaitse. Vaktsiin 2007, 25, 6334–6340. [CrossRef]
70. Luo, F.; Feng, Y.; Liu, M.; Li, P.; Pan, Q.; Jeza, VT; Xia, B.; Wu, J.; Zhang, XL-tüüpi IVB pilusoperoni promootor, mis kontrollib raske ägeda respiratoorse sündroomiga seotud koronaviiruse nukleokapsiidi geeni ekspressiooni Salmonella enterica Serovar Typhi-s, kutsub esile intranasaalse vaktsineerimisega täieliku immuunvastuse. Clin. Vaktsiin Immunol. CVI 2007, 14, 990–997. [CrossRef] [PubMed]
71. Stephen, J.; Kaalud, HE; Benson, RA; Erben, D.; Garside, P.; Alum-adjuvandi aktiivsuses mängivad olulist rolli Brewer, JM Neutrofiilide sülemlemine ja rakuvälise lõksu moodustumine. NPJ Vaccines 2017, 2, 1. [CrossRef] [PubMed]
72. Li, E.; Chi, H.; Huang, P.; Yan, F.; Zhang, Y.; Liu, C.; Wang, Z.; Li, G.; Zhang, S.; Mo, R.; et al. Uus bakteritaoline osakeste vaktsiin, millel on MERS-CoV retseptorit siduv domeen, indutseerib hiirtel spetsiifilisi limaskesta ja süsteemseid immuunvastuseid. Viirused 2019, 11, 799. [CrossRef] [PubMed]
73. Ma, C.; Li, Y.; Wang, L.; Zhao, G.; Tao, X.; Tseng, CT; Zhou, Y.; Du, L.; Jiang, S. Intranasaalne vaktsineerimine MERS-CoV spike-valgu rekombinantse retseptorit siduva domeeniga indutseerib palju tugevamaid lokaalseid limaskesta immuunvastuseid kui subkutaanne immuniseerimine: mõju uudsete limaskesta MERS-vaktsiinide väljatöötamisele. Vaktsiin 2014, 32, 2100–2108. [CrossRef]
74. Haagmans, BL; van den Brand, JM; Raj, VS; Volz, A.; Wohlsein, P.; Smits, SL; Schipper, D.; Bestebroer, TM; Okba, N.; Fux, R.; et al. Ortopoksviirusel põhinev vaktsiin vähendab viiruse eritumist pärast MERS-CoV nakatumist dromedarkaamelite puhul. Teadus 2016, 351, 77–81. [CrossRef]
75. Mudgal, R.; Nehul, S.; Tomar, S. Limaskesta vaktsiini väljavaated: SARS-CoV ukse sulgemine-2. Humm. Vaktsiinid Immunother. 2020, 16, 2921–2931. [CrossRef]
76. Moreno-Fierros, L.; García-Silva, I.; Rosales-Mendoza, S. SARS-CoV{5}} vaktsiinide väljatöötamine: kas peaksime keskenduma limaskestade immuunsusele? Eksperdi arvamus. Biol. Seal. 2020, 20, 831–836. [CrossRef]
77. Park, JH; Lee, HK COVID{1}} vaktsiinide tarneteed. Vaktsiinid 2021, 9, 524. [CrossRef] [PubMed]
78. Tiboni, M.; Casettari, L.; Illum, L. Nina vaktsineerimine SARS-CoV vastu-2: sünergiline või alternatiiv intramuskulaarsetele vaktsiinidele? Int. J. Pharm. 2021, 603, 120686. [CrossRef]
79. Ashraf, MU; Kim, Y.; Kumar, S.; Seo, D.; Ashraf, M.; Bae, YS COVID-19 vaktsiinid (uuesti läbi vaadatud) ja suu limaskesta vektorsüsteem potentsiaalse vaktsiiniplatvormina. Vaktsiinid 2021, 9, 171. [CrossRef] [PubMed]
80. Roozen, GVT; Prins, M.; van Binnnendijk, R.; den, G.; Kuiper, V.; Prins, C.; Janse, JJ; Kruithof, AC; Feltkamp, MCW; Kuijer, M.; et al. Fraktsionaalse annuse mRNA-1273 SARS-CoV-2 vaktsiini nahasisese manustamise taluvus, ohutus ja immunogeensus tervetel täiskasvanutel annust säästva strateegiana. medRxiv 2021. [CrossRef]
81. Jung, KY; Lim, HH; Choi, G.; Choi, JO IgA immunotsüütide ning seerumi ja sülje IgA vanusega seotud muutused pärast tonsillektoomiat. Acta Oto-Laryngologica. Suppl. 1996, 523, 115–119.
82. Yu, J.; Collins, N.; Mercado, NB; McMahan, K.; Chandrashekar, A.; Liu, J.; Anioke, T.; Chang, A.; Giffin, V.; Lootus, D.; et al. Seedetrakti SARS-CoV-2 manustamise kaitsetõhusus intranasaalse ja intratrahheaalse SARS-CoV-2 nakatumise vastu reesusmakaakidel. J. Virol. 2021, JVI0159921. [CrossRef] [PubMed]
83. Du, Y.; Xu, Y.; Feng, J.; Hu, L.; Zhang, Y.; Zhang, B.; Guo, W.; Mai, R.; Chen, L.; Fang, J.; et al. Rekombinantse RBD vaktsiinist põhjustatud kaitsva immuunsuse manustamine SARS-CoV-2 vastu hiirtele ninasisene. Vaktsiin 2021, 39, 2280–2287. [CrossRef] [PubMed]
84. Kim, YI; Kim, D.; Yu, KM; SEO, HD; Lee, SA; Casel, MAB; Jang, SG; Kim, S.; Jung, W.; Lai, CJ; et al. Terade retseptorit siduva domeeni nanoosakeste väljatöötamine vaktsiinikandidaadina SARS-CoV-2 nakkuse vastu tuhkrutel. Mbio 2021, 12, e00230-21. [CrossRef] [PubMed]
85. Pitcovski, J.; Gruzdev, N.; Abzach, A.; Katz, C.; Ben-Adiva, R.; Kaubamärk Schwartz, M.; Yadid, I.; Haviv, H.; Rapoport, I.; Bloch, I.; et al. Suukaudne subühiku SARS-CoV-2 vaktsiin kutsub esile süsteemseid neutraliseerivaid IgG, IgA ja rakulisi immuunvastuseid ning võib suurendada neutraliseerivate antikehade reaktsioone, mis on loodud süstitud vaktsiiniga. bioRxiv 2021. [CrossRef]
86. Sui, Y.; Li, J.; Zhang, R.; Prabhu, SK; Elyard, HA; Venzon, D.; Cook, A.; Pruun, RE; Teow, E.; Velasco, J.; et al. Kaitse SARS-CoV-2 nakkuse eest reesusmakaakide limaskesta vaktsiiniga. JCI Insight 2021, 6, e148494. [CrossRef]
87. Sui, Y.; Li, J.; Andersen, H.; Zhang, R.; Prabhu, S.; Hoang, T.; Venzon, D.; Cook, A.; Brown, R.; Teow, E.; et al. Intranasaalselt manustatav SARS-CoV-2 beetavariandi subühiku kordusvaktsiin takistab beetavariandi viiruse replikatsiooni reesusmakaakidel. bioRxiv 2021. [CrossRef]
88. Jiang, L.; Driedonks, T.; Lowman, M.; Jong, WSP; van den Berg van Saparoea, HB; Dhakal, S.; Zhou, R.; Caputo, C.; Littlefield, K.; Sitaras, I.; et al. Bakteriaalne rakuväline vesiikulipõhine intranasaalne vaktsiin SARS-CoV vastu-2. bioRxiv 2021. [CrossRef]
89. Rothen, DA; Krenger, PS; Nonic, A.; Balke, I.; Vogt, A.-C.; Chang, X.; Manenti, A.; Vedovi, F.; Resevica, G.; Walton, S.; et al. VLP-põhise COVID-i-19-vastase vaktsiini ninasisene manustamine kutsub esile SARS-CoV-2-vastaseid neutraliseerivaid antikehi ja probleeme tekitavate variantide teket. bioRxiv 2021. [CrossRef]
90. Bellier, B.; Saura, A.; Lujan, L.; Molina, C.; Lujan, HD; Klatzmann, D. Termostabiilne suukaudne SARS-CoV-2 vaktsiin kutsub esile limaskesta ja kaitsva immuunsuse. bioRxiv 2021. [CrossRef]
91. King, RG; Silva-Sanchez, A.; Peel, JN; Botta, D.; Meza-Perez, S.; Allie, R.; Schultz, MD; Liu, M.; Bradley, JE; Qiu, S.; et al. AdCOVID-i üheannuseline intranasaalne manustamine kutsub hiirtel esile süsteemse ja limaskesta immuunsuse SARS-CoV-2 vastu. Vaktsiinid 2020, 9, 881. [CrossRef] [PubMed]
92. Wu, S.; Zhong, G.; Zhang, J.; Shuai, L.; Zhang, Z.; Wen, Z.; Wang, B.; Zhao, Z.; Laul, X.; Chen, Y.; et al. Üks annus adenoviiruse vektoriga vaktsiini kaitseb SARS-CoV-2 nakatumise eest. Nat. Commun. 2020, 11, 4081. [CrossRef]
93. Hassan, AO; Kafai, NM; Dmitrijev, IP; Fox, JM; Smith, BK; Harvey, IB; Chen, RE; Winkler, ES; Wessel, AW; Case, JB; et al. Üheannuseline intranasaalne chad-vaktsiin kaitseb ülemisi ja alumisi hingamisteid SARS-CoV-2 eest. Cell 2020, 183, 169–184. [CrossRef]
94. Hassan, AO; Shrihari, S.; Gorman, MJ; Ying, B.; Yuan, D.; Raju, S.; Chen, RE; Dmitrijev, IP; Kashentseva, E.; Adams, LJ; et al. Intranasaalne vaktsiin kaitseb hiirtel püsivalt SARS-CoV-2 variantide eest. Cell Rep. 2021, 36, 109452. [CrossRef] [PubMed]
95. Lapuente, D.; Fuchs, J.; Willar, J.; Antao, AV; Everlein, V.; Uhlig, N.; Issmail, L.; Schmidt, A.; Oltmanns, F.; Peeter, AS; et al. Limaskesta kaitsev immuunsus SARS-CoV-2 vastu pärast heteroloogset süsteemset RNA-limaskesta adenoviirusvektori immuniseerimist. Nat. Commun. 2021, 12, 6871. [CrossRef] [PubMed]
96. Chandrasekar, SS; Phanse, Y.; Hildebrand, RE; Hanafy, M.; Wu, CW; Hansen, CH; Osorio, JE; Suresh, M.; Talaat, AM Lokaalsed ja süsteemsed immuunvastused SARS-CoV-2 vastu pärast limaskesta immuniseerimist. Vaktsiinid 2021, 9, 132. [CrossRef]
97. Kibler, KV; Szczerba, M.; Järv, DF; Roeder, AJ; Rahman, M.; Hogue, BG; Wong, LYR; Perlman, S.; Li, Y.; Jacobs, BL Intranasaalne immuniseerimine vaktsiiniaviiruse vaktsiinivektoriga, mis ekspresseerib fusioonieelselt stabiliseeritud SARS-CoV-2 tippu, kaitses hiiri täielikult surmava nakatumise eest SARS-CoV tugevalt muteerunud hiirega kohandatud SARS2-N501YMA30 tüvega. -2. bioRxiv 2021. [CrossRef]
98. Ku, MW; Bourgine, M.; Authié, P.; Lopez, J.; Nemirov, K.; Moncoq, F.; Noirat, A.; Vesin, B.; Nevo, F.; Blanc, C.; et al. Intranasaalne vaktsineerimine lentiviiruse vektoriga kaitseb prekliinilistes loommudelites SARS-CoV-2 eest. Rakuperemees mikroob 2021, 29, 236–249. [CrossRef] [PubMed]
99. Peng, KW; Carey, T.; Lech, P.; Vandergaast, R.; Munoz-Alia, MA; Packiriswamy, N.; Gnanadurai, C.; Krotova, K.; Tesfay, M.; Ziegler, C.; et al. SARS-CoV-2 immuunsuse tugevdamine ahvilistel, kasutades suukaudset rabdoviiruse vaktsiini. bioRxiv 2021. [CrossRef]
100. Zhou, R.; Wang, P.; Wong, Y.-C.; Xu, H.; Lau, S.-Y.; Liu, L.; Mok, BW-Y.; Peng, Q.; Liu, N.; Deng, S.; et al. SARS-CoV{5}} nakkuse nasaalne ennetamine intranasaalse gripivastase vaktsineerimisega. bioRxiv 2021. [CrossRef]
101. Sieling, P.; King, T.; Wong, R.; Nguyen, A.; Wnuk, K.; Gabitzsch, E.; Rice, A.; Adisetiyo, H.; Hermreck, M.; Verma, M.; et al. Prae hAd5 spike pluss nukleokapsiidiga vaktsineerimine indutseerib 1. faasi subjektidel T-raku keskmiste reaktsioonide kümnekordse suurenemise, mis on püsinud spike variantide vastu. medRxiv 2021. [CrossRef]
102. Moore, AC; Dora, EG; Peinovitš, N.; Tucker, KP; Link.; Cortese, M.; Tucker, SN Rekombinantse adenoviiruse limaskesta vaktsiini eelkliinilised uuringud SARS-CoV-2 nakkuse vältimiseks. bioRxiv 2020. [CrossRef]
103. Wu, S.; Huang, J.; Zhang, Z.; Wu, J.; Zhang, J.; Ah.; Zhu, T.; Zhang, J.; Luo, L.; Fan, P.; et al. Aerosoolitud adenoviiruse tüüpi-5 vektoripõhise COVID-19 vaktsiini (Ad5-nCoV) ohutus, talutavus ja immunogeensus täiskasvanutel: esialgne aruanne avatud ja randomiseeritud 1. faasi kliinilise uuringu kohta kohtuprotsess. Lancet Infect. Dis. 2021, 21, 1654–1664. [CrossRef]
104. Loe, AF; Baigent, SJ; Powers, C.; Kgosana, LB; Blackwell, L.; Smith, LP; Kennedy, DA; Walkden-Brown, SW; Nair, VK Imperfect vaktsineerimine võib suurendada väga virulentsete patogeenide ülekandumist. PLoS Biol. 2015, 13, e1002198. [CrossRef]
105. Bailey, RI; Cheng, HH; Chase-Topping, M.; Mays, JK; Anacleto, O.; Dunn, JR; Doeschl-Wilson, A. Patogeeni ülekandumine vaktsineeritud peremeesorganismidelt võib põhjustada annusest sõltuvat virulentsuse vähenemist. PLoS Biol. 2020, 18, e3000619. [CrossRef]
106. Acevedo, MA; Dillemuth, FP; Flick, AJ; Faldyn, MJ; Elderd, BD Virulentsusest tingitud kompromissid haiguste edasikandumises: metaanalüüs. Evol. Int. J. Org. Evol. 2019, 73, 636–647. [CrossRef]
107. Casadevall, A.; Pirofski, LA Mikroobide loomade virulentsuse eelised ja kulud. mBio 2019, 10, e00863-19. [CrossRef]
108. Vijgen, L.; Keyaerts, E.; Moës, E.; Thoelen, I.; Wollants, E.; Lemey, P.; Vandamme, AM; Van Ranst, M. Inimese koronaviiruse OC43 täielik genoomne järjestus: Molekulaarse kella analüüs viitab suhteliselt hiljutisele zoonootilisele koroonaviiruse levikule. J. Virol. 2005, 79, 1595–1604. [CrossRef]
109. Carter, RW; Sanford, JC Uus pilk vanale viirusele: inimese H1N1 gripiviiruse mutatsioonide kogunemise mustrid aastast 1918. Teor. Biol. Med. Mudel. 2012, 9, 42. [CrossRef] [PubMed]
110. Christman, MC; Kedwaii, A.; Xu, J.; Donis, RO; Lu, G. Pandemic (H1N1) 2009 viirus uuesti läbi vaadatud: evolutsiooniline tagasivaade. Nakata. Genet. Evol. J. Mol. Epidemiol. Evol. Genet. Nakata. Dis. 2011, 11, 803–811. [CrossRef]
111. Teras, A.; Gubler, DJ; Bennett, SN Dengue viiruse tüübi loomulik nõrgenemine-2 pärast mitmeid saarepuhanguid: Vaikse ookeani lõunaosa sündmuste retrospektiivne fülogeneetiline uuring kolm aastakümmet tagasi. Viroloogia 2010, 405, 505–512. [CrossRef] [PubMed]
113. Ariën, KK; Vanham, G.; Arts, EJ Kas HIV{1}} muutub inimestel vähem virulentseks? Nat. Rev. Microbiol. 2007, 5, 141–151. [CrossRef] [PubMed]
113. Blanquart, F.; Grabowski, MK; Herbeck, J.; Nalugoda, F.; Serwadda, D.; Eller, MA; Robb, ML; Grey, R.; Kigozi, G.; Laeyendecker, O.; et al. Ülekandumise ja virulentsuse evolutsiooniline kompromiss selgitab HIV-i-1 nõrgenemist Ugandas. eElu 2016, 5, e20492. [CrossRef] [PubMed]
114. Domineeriv deltavariant "võib muutuda väljasuremiseks", ütlevad teadlased.
115. Määratud AY-liinide kokkuvõte.
116. Bernasconi, A.; Pinoli, P.; Al Khalaf, R.; Alfonsi, T.; Canakoglu, A.; Cilibrasi, L.; Ceri, S. Aruanne Omicron Spike Mutations on Epitoope and Immunological/Epidemiological/Kinetics Effects from Literature. Saadaval võrgus: https://virological.org/t/reporton-omicron-spike-mutations-on-epitopes-and-immunological-epidemiological-kinetics-effects-from-literature/770 (juurdepääs 20. detsembril 2021).
117. Venkatakrishnan, A.; Praveen, A.; Lenehan, P.; Suratekar, R.; Raghunathan, B.; Niesen, M.; Soundararajan, V. Omicroni SARS-CoV variant-2 sisaldab unikaalset oletatava viirusliku või inimese genoomilise päritoluga mutatsiooni. Saadaval võrgus: https://osf.io/f7txy/ (kasutatud 20. detsembril 2021).
118. Armengaud, J.; Delaunay-Moisan, A.; Thuret, J.-Y.; van Anken, E.; Acosta-Alvear, D.; Aragón, T.; Arias, C.; Blondel, M.; Braakman, I.; Collet, J.-F.; et al. Looduslikult nõrgenenud SARS-CoV-2olulisus võitluses COVID-i vastu{7}}. Keskkond. Microbiol. 2020, 22, 1997–2000. [CrossRef] [PubMed]
119. De Klerk, A.; Swanepoel, PI; Lourens, RF; Zondo, M.; Abodunran, I.; Lytras, S.; MacLean, O.; Robertson, DL; Kosakovsky tiik, SL; Zehr, JD; et al. Konserveeritud rekombinatsioonimustrid koroonaviiruse alamperekondades. bioRxiv 2021. [CrossRef]
120. Brewer, WH; Smith, FD; Sanford, JC Teabekadu: potentsiaal kiirendada RNA viiruste loomulikku geneetilist nõrgenemist. Bioloogilises teabes; World Scientific: Singapur, 2013; lk 369–384. [CrossRef]
121. Hiina SARS-i molekulaarse epidemioloogia konsortsium. SARS-i koroonaviiruse molekulaarne areng SARSi epideemia ajal Hiinas. Teadus 2004, 303, 1666–1669. [CrossRef] [PubMed]
122. Bergman, P.; Blennow, O.; Hansson, L.; Mielke, S.; Nowak, P.; Chen, P.; Söderdahl, G.; Österborg, A.; Edvard Smith, CI; Wullimann, D.; et al. MRNA BNT162b2 vaktsiini ohutus ja efektiivsus SARS-CoV-2 vastu viies immuunpuudulikkusega patsientide ja tervete kontrollide rühmas tulevases avatud kliinilises uuringus. EBioMedicine 2021, 74, 103705. [CrossRef]
123. Niesen, M.; Anand, P.; Silvert, E.; Suratekar, R.; Pawlowski, C.; Ghosh, P.; Lenehan, P.; Hughes, T.; Zemmour, D.; Ohoro, JC; et al. COVID-19 vaktsiinid pärsivad SARS-CoV-2 genoomset mitmekesisust: Vaktsineerimata patsientidel on antigeensete mutatsioonide varieeruvus suurem. medRxiv 2021. [CrossRef]
124. Focosi, D.; Maggi, F.; Franchini, M.; McConnell, S.; Casadevall, A. COVID-i vastaste antikehadepõhiste ravimite immuunkaitsevariantide analüüs-19: süstemaatiline ülevaade. Int. J. Mol. Sci. 2021, 23, 29. [CrossRef]
For more information:1950477648nn@gmail.com


