

Kahe diagnostilise analüüsi võrdlus sigade epideemilise kõhulahtisuse viiruse seerumit neutraliseerivate antikehade tuvastamiseks
Oct 11, 2023
Abstraktne:
Laktogeenne immuunsus on oluline põrsaste kaitsmiseks paljude patogeenide, sealhulgas sigade epideemilise kõhulahtisuse viiruse eest. Tsirkuleerivad neutraliseerivate antikehade tasemed emise seerumites võivad aidata kindlaks teha, kas tuvastatav immuunvastus võib anda põrsastele kaitse. Neutraliseerivaid antikehi saab tuvastada erinevate diagnostiliste testide abil. Selles uuringus hinnati sigade epideemilise kõhulahtisuse viirust neutraliseerivate antikehade kahe neutraliseeriva antikeha testi diagnostilisi omadusi nakatunud nooremiste seerumis. Neli ravirühma, kontrollrühma, vaktsineerimata, enne nakatamist vaktsineeritud ja pärast nakatamist vaktsineeritud, koosnes 20 nooremisest. Igalt noorelt koguti seerumiproovid enne ja pärast sigade epideemilise kõhulahtisuse viirusega nakatumist. Proove hinnati neutraliseerivate antikehade olemasolu suhtes fluorestseeruva fookuse neutraliseerimise testi ja suure läbilaskevõimega neutraliseerimistesti abil. Selle uuringu fluorestsentsfookuse neutraliseerimise ja suure läbilaskevõimega neutraliseerimise testide diagnostiline tundlikkus ja spetsiifilisus optimeeriti vastavalt 80% ja 80% fluorestsentsi vähenemise lahjenduse piiril ning need näitasid kappastatistika põhjal mõõdukat kokkulepet. Fookuse fluorestseeruva neutraliseerimise ja suure läbilaskevõimega neutraliseerimise teste saab kasutada neutraliseerivate antikehade seisundi jälgimiseks loomades või loomapopulatsioonis. Suure läbilaskevõimega testil on fookusfluorestsentstesti ees eelised, kuna sellel on näidatud piirväärtusel kõrgem spetsiifilisus ja tulemuste olemus võimaldab üksikute tulemuste vahel rohkem vahet teha.
cistanche toidulisandi eelised - suurendavad immuunsust
Märksõnad: PEDV; neutraliseerivad antikehad; diagnostiline analüüs
1. Sissejuhatus
Sigade epideemilise diarröa viirus (PEDV) on alfakoronaviirus, mis on muutunud Ameerikas endeemiliseks pärast selle tekkimist Ameerika Ühendriikides 2013. aastal [1–3]. Bioohutusmeetmed on keskendunud patogeenide (nt PEDV) hoidmisele seakarjadest, et leevendada haiguse mõju [4]. Seroloogiline testimine on kasulik vahend, et teha kindlaks, kas sead on varem patogeeniga kokku puutunud ja sellega nakatunud. Kokkupuude võib toimuda looduslikult (nt viirusega koormatud materjali allaneelamine) või tahtlikult (nt segunemine külviloomadega, suukaudne-nasaalne inokulatsioon või maoloputus). Selle uuringu jaoks saavutati kokkupuude PEDV-positiivse koehomogenaadiga tahtliku nakatamise teel kinnitatud kliinilisest PEDV puhangust. Song jt. [5] näitasid, et seerumi neutraliseerivate antikehade tiitrid ei erinenud emistel, kellele manustati suukaudset või intramuskulaarset Vero rakuga nõrgestatud PEDV DR13 vaktsiini. See uuring näitas ka, et suukaudselt vaktsineeritud emistel oli madalam põrsaste suremus võrreldes intramuskulaarse vaktsineerimisega. Lisaks on de Arriba et al. [6] näitasid korrelatsiooni IgA ja IgG antikehi sekreteerivate rakkude (ASC) vahel veres ja soolestikuga seotud lümfoidkoes. Emiste difuusne epiteelikooriline platsenta takistab immuunrakkude ja antikehade ülekandumist põrsastele emakasse, muutes sead sündides agammaglobulineemilisteks [7]. Ema immuunsus kandub emistelt põrsastele rinnanäärme sekretsiooni kaudu ja sellel on oluline roll soolestiku patogeenide, nagu PEDV, TGEV ja rotaviirus, eest kaitsmisel. Seetõttu tuginevad põrsad nende patogeenide eest kaitsmiseks ternespiima ja piima antikehadele. Seerumi immunoglobuliinid annavad suure panuse ternespiima, samas kui piimas sisalduvad immunoglobuliinid toodetakse piimanäärmes [8]. Seega võivad neutraliseerivate antikehade testid aidata kindlaks teha, kas tuvastatav immuunvastus poegimiseelses emise seerumis võib anda põrsastele kaitse. Antikehade neutraliseerimise mehhanismid hõlmavad agregatsiooni, viiruse sihtrakku sisenemise pärssimist ja viiruse replikatsiooni pärssimist sihtrakus [9]. PEDV neutraliseerivate antikehade tuvastamiseks on välja töötatud diagnostilised testid, sealhulgas viiruse neutraliseerimine (VN), fluorestsentsfookuse neutraliseerimine (FFN) ja suure läbilaskevõimega neutraliseerimise test (HTNT) [2,10–13]. Nagu on kirjeldanud Sarmento et al. [2], on FFN-test VN-testi täiustus, kuna analüüs on tundlikum, kuna analüüs põhineb nakatunud Vero rakkude pinnal ekspresseeritud viiruse antigeenide tuvastamisel, samas kui VN-test põhineb põhjustatud tsütopaatilisel toimel. viiruse poolt. Lisaks saab FFN-i tulemusi saada kiiremini kui VN-i tulemusi, kuna tsütopaatilise toime jälgimine võtab kauem aega võrreldes viiruse kinnitumisega FFN-iga. HTNT test on FFN-testi täiendav täiustus, kuna HTNT test tugineb tulemuste saamiseks pigem digitaalse kujutise tsütomeetriale kui tehniku tõlgendusele. Seega võimaldab terve plaadi lugemist vähem kui 3 minutiga, annab fluorestsentsi intensiivsuse kvantitatiivse mõõtmise ja võimaluse salvestada pilte ülevaatamiseks. Seega näis HTNT olevat sobiv kasutamiseks kaubanduslikes seakarjades. Käesolevas uuringus võrreldi kahe PEDV, FFN ja HTNT testi neutraliseeriva antikeha testi diagnostilisi omadusi (tundlikkus ja spetsiifilisus) ning positiivseid ja negatiivseid ennustavaid väärtusi. See põhineb Sarmento jt tööl. [2] testides naiivseid, nakatunud ja vaktsineeritud loomi, et aidata valideerida testi kasutamiseks suure läbilaskevõimega diagnostikalaboris. Sarmento jt tulemuste põhjal. [2], on meie nullhüpotees, et kahe testi diagnostilistes omadustes ei ole erinevusi PEDV-ga nakatunud nooremiste seerumis neutraliseerivate PEDV antikehade tuvastamiseks.

cistanche toidulisandi eelised - suurendavad immuunsust
2. Materjalid ja meetodid
2.1. Sigade allikad ja valik
Nagu varem kirjeldasid Brown et al. [14], selles uuringus kasutati 4 ravirühma, mida nimetatakse kontrolliks, NV (vaktsineerimata), eel (vaktsineeritud enne nakatamist) ja post (vaktsineeritud pärast nakatamist). Iga rühm koosnes algselt 20 kaubanduslikust, ristanditest, nooremisest. Kokku valiti mugavalt kokku 60 nooreamist Iowa keskosas asuvast kaubanduslikust seafarmist, millel polnud PEDV-d esinenud. Kontrollrühma 20 nooremat kasutati uuesti NV rühma jaoks. NV rühm koosnes ainult 18 seast, kuna kaks nooreamist eemaldati uuringust tüsistuste tõttu, mis ei olnud seotud PEDV-nakkusega.
PEDV negatiivse staatuse täiendavaks tõendiks koguti 12 ml verd jugulaarse veenipunktsiooniga, kasutades 16-mõõturit, 1,{3}} tollist nõela ja 12 ml süstalt. Seerum koguti vereproovidest tsentrifuugimise teel 1500 × g juures 8 minutit (min), jagati 1 ml alikvootideks ja säilitati temperatuuril –80 °C. Seerumiproove testiti wv-ELISA abil Iowa osariigi ülikooli veterinaardiagnostika laboris (ISU-VDL, Ames, IA, USA) [15].
2.2. Loomade määramine ravirühmadesse
Kuuskümmend nooreamist jagati ühtlaselt 3 rühma, millest igaüks koosnes 20 kaubanduslikust ristanditest. Nelja ravirühma moodustamiseks kasutati kahes ravirühmas, CONTROL ja NV, järjestikku 20 nooremat. 20 noorea taaskasutamine võimaldas arendada ja kontrollida PEDV-positiivsete nooremiste rühma, kes olid kokku puutunud PEDV-ga, ning vähendas uuringus kasutatud loomade koguarvu. Ülejäänud 40 nooreamist kuulusid rühmadesse PRE ja POST, igas rühmas oli 20 nooreamist. Sündmuste ajakava ravirühmade kaupa on kirjeldanud Brown et al. [14]. Lühidalt, pärast nakatamist koguti igas ravirühmas kord nädalas individuaalsed vereproovid. Täiendavat täpsustust käsitletakse punktides 2.4 ja 2.5. Ravirühma "PRE" nooremised vaktsineeriti enne väljaspool asutusse saabumist. Ravirühma "POST" nooremised vaktsineeriti alles pärast nakatamist.
2.3. Sigade majutamine ja hooldamine
Uurimisasutusse saabudes majutati nooremised ravirühmas: kõik 20 nooremat ravirühmas olid ühes aedikus koos ad libitum sööda ja veega. Kõik pastakad olid samas ruumis. Saastumise minimeerimiseks jäeti üks pliiats NV PRE ja POST rühmade vahele tühjaks. Tootmisstandarditele vastavuse tagamiseks jälgiti sööda, vett, toatemperatuuri kõrgeimaid ja madalaimaid väärtusi ning niiskuse kõrgeimaid ja madalaimaid väärtusi. Tervisevaatlusi viidi läbi ja registreeriti kord päevas, et hinnata liikumist, letargiat, väljaheite konsistentsi ja muid haiguse kliinilisi tunnuseid. Iga noore looma paremasse kõrva pandi kõrvamärk (Integra Hog, Allflex, Dallas, TX, USA) looma individuaalseks tuvastamiseks.
2.4. Suuline väljakutse
Pärast 4-päevast kohanemisperioodi eksponeeriti iga nooreamine CONTROLis suukaudselt PEDV-ga, kasutades koemomogenaati, mis koguti PEDV kinnitatud kliinilisest puhangust kommertsfarmis. Homogenaadi sekveneeris Iowa osariigi ülikooli veterinaardiagnostika labor ja leiti, et see on USA prototüübi tüvi, genorühm G2b. Kümme milliliitrit homogenaati segati 590 ml fosfaatpuhverdatud soolalahusega ja igale noorele manustati irooniliselt 30 ml segu. Inokulaadi PEDV-positiivsus kinnitati reaalajas pöördtranskriptaasi polümeraasi ahelreaktsiooniga CT väärtusega 19, 6 ja 14, 23 × 107 genoomset koopiat ml kohta ning pärast nakatamist tekkis nooremistel kõhulahtisus. Individuaalsed vereproovid koguti iga 7 päeva järel pärast nakatamist jugulaarse veenipunktsiooniga, nagu ülalpool kirjeldatud, kuni 42. päevani pärast nakatamist. Seerum koguti ja säilitati ülalkirjeldatud viisil ning proovid esitati ISU VDL-le neutraliseerivate antikehade tuvastamiseks fookusfluorestsentsneutralisatsiooni testi ja suure läbilaskevõimega viiruse neutraliseerimise testiga. 60. päeval pärast CONTROL-i esmast väljakutset toodi ülejäänud 40 nooremat uurimisasutusse ja 18 CONTROL-noorelast said NV. Uuringuga mitteseotud tingimuste tõttu eemaldati CONTROList kaks nooremat. Pärast 3-päevast saabumisjärgset kohanemisperioodi nakatati uuesti 18 nooremat (NV) ja 40 nooremat (PRE ja POST), võeti vereproovid, koguti seerum ja proovid esitati testimiseks, nagu siin kirjeldatud. .
2.5. Noorte vaktsineerimine
Päritolufarmi oli jäänud 40 nooreamat, kes toodi uurimisasutusse 8,5 nädalat pärast CONTROLi saabumist. Kakskümmend nooremat vaktsineeriti 5 ja 2 nädalat enne nakatamist, nagu soovitas vaktsiini tootnud ettevõte, kaubanduslikult saadava surmatud PEDV vaktsiiniga, genogrupp G2b (Porcine Epidemic Diarrhea Vaccine, Zoetis, Inc., Florham Park, NJ , USA), mis hõlmab PRE rühma. Ülejäänud kakskümmend vaktsineeriti sama vaktsiiniga 1 ja 3 nädalat pärast PEDV-nakkust, mis hõlmas POST rühma. Kahekümnest algsest CONTROL nooremisest jäi uuringusse kaheksateist ja nad kuulusid NV rühma ega saanud PEDV vastu vaktsineerimist
cistanche taime suurendav immuunsüsteem
2.6. Neutraliseerivate antikehade testid
2.6.1. Fluorestseeruva fookuse neutraliseerimise (FFN) protseduur
FFN-i viis läbi Iowa osariigi ülikooli veterinaardiagnostika labor, standardne tööprotseduur 9.5324 [16]. Lühidalt, Vero 76 rakud valmistati loputamisega ja inkubeerimisega trüpsiin-etüleendiamiintetraäädikhappega (EDTA) 5 minutit temperatuuril 37 °C. Tehti rakkude ja rakkude paljundussöötme lahjendus 1:20 ning 96-süvendplaadi igasse süvendisse lisati 200 µL ja inkubeeriti 48 tundi. Plaadid visati maha ja loputati viiruse inokulatsioonisöötmega. Seerumiproovid inaktiveeriti kuumusega veevannis temperatuuril 56 °C 30 minutit ja seejärel lahjendati plaadil 2-kordses seerialahjenduses, alustades suhtega 1:10. Varuviirus lahjendati 100–200 fookust moodustava ühikuni 100 µl kohta ja igasse süvendisse lisati 100 µL ja inkubeeriti 60 minutit temperatuuril 37 ◦C 5% süsinikdioksiidiga (CO2). Testplaat kallati, loputati ja vastavatesse süvenditesse lisati 150 µl seerumi/viiruse segu ning inkubeeriti 60 minutit temperatuuril 37 °C. Seerumi/viiruse segud valati maha ja süvendeid pesti viiruse inokulatsioonisöötmega. Igasse süvendisse lisati 150 µl viiruse inokulatsioonikeskkonda ja inkubeeriti 24 tundi 37 °C ja 5% CO2 juures. Sööde eemaldati plaadilt ja rakud fikseeriti 80% atsetooni lisamisega, mida on jahutatud jäävannis 15 minutit. Atsetoon visati ära ja plaat kuivatati õhu käes. Valmistati 1:100 lahjendus FITC konjugeeritud PEDV NP monoklonaalsest antikehast, mis oli lahjendatud PBS-is (pH 7,2), kõikidesse süvenditesse lisati 50 µL ja inkubeeriti 37 °C juures 60 minutit. Plaati pesti PBS-ga ja seejärel loeti fluorestsentsmikroskoobiga (Olympus BX51, 10X objektiiv, FITC filter). Positiivsed süvendid ei näita fluorestseeruvaid naastusid ja negatiivsed näitavad rohelisi naastu. Neutraliseerivate antikehade tiitrid väljendati kõrgeima seerumi lahjendusena viiruse replikatsiooni vähenemisega 90% võrreldes viiruse kontrolliga. Proovid, mille tiiter oli 20 või suurem, klassifitseeriti PEDV-d neutraliseerivate antikehade suhtes positiivseteks. Kõrgem tiiter näitab neutraliseerivate antikehade suuremat kontsentratsiooni proovis. Positiivsete ja negatiivsete seerumiproovide näide on saadaval lisamaterjalides.
2.6.2. Suure läbilaskevõimega fluorestsentsi neutraliseerimise testi (HTNT) protseduur
HTNT teostas Iowa osariigi ülikooli veterinaardiagnostika labor, standardne tööprotseduur 9.5324 versioon 2 [17]. Seerumiproovid inaktiveeriti kuumusega veevannis temperatuuril 56 °C 30 minutit. Viiruse põhilahus lahjendati 10- korda viiruse inokuleerimissöötmes (DMEM koos 2 µg/ml trüpsiin-TPCK-ga), kanti Vero 81 rakkudesse (ATTC® CCL-81™) ja inkubeeriti 37 ◦C juures. 5% CO2-ga 5 päeva. Viimast lahjendust, milles täheldati tsütopaatilist toimet, kasutati koekultuuri nakkusliku keskmise annuse (TCID50) määramiseks Spearmani ja Karberi meetodil [18]. Sada mikroliitrit rakulahust (rakkude paljundussööde, trüpsiin-EDTA ja Vero 81 rakud) lahjendati 100 µL raku paljundussöötmega (DMEM 10% FBS-i ja 1% penitsilliini-streptomütsiiniga), et saada lahjendus 1:1. . Hemotsütomeetrit kasutati lahjenduse loendamiseks ja arvutamiseks, et saada 5 × 10⁴ rakku süvendi kohta ning lisati läbipaistva põhjaga musta 96-süvendiga plaadi igasse süvendisse (Coring 96 süvendiga CellBind mikroplaat, Sigma) ja inkubeeriti 48 tundi 37 ◦C 5% CO2-ga, et muuta rakud konfluentseks (100% konfluentseks). Igal plaadil olid positiivse kontrolli, negatiivse kontrolli ja viirusekontrolli süvendid. Seejärel pandi viis mikroliitrit kuumusega inaktiveeritud kontrolle ja proove kahekordsetesse süvenditesse, et teha 1:40 lahjendus esmalt 1:20, lisades 95 µL viiruse inokulatsioonisöödet, seejärel 100 µL 1:10 lahjendatud PEDV viirust (3,16 × 10⁵). TCID50/ml). Seerumi/viiruse segu inkubeeriti 1 tund 37 °C juures 5% CO2-ga. Testplaadi kõiki rakusüvendeid pesti 3 korda 150 µl rakupesusöötmega (DMEM koos 1% penitsilliini ja streptomütsiini seguga) ning 150 µL seerumi/viiruse segu ja viiruse kontrolle kanti testplaadile ja inkubeeriti 90 minutit. temperatuuril 37 ◦C. Seerumi/viiruse segu visati ära ja plaate pesti üks kord rakupesusöötmega, nagu ülalpool kirjeldatud, seejärel üks kord viiruse inokulatsioonisöötmega. Igasse süvendisse lisati viiruse inokulatsioonikeskkond (150 µL) ja inkubeeriti 24 tundi 37 °C juures 5% CO2-ga. Viiruse inokulatsioonikeskkond visati ära ja plaati pesti PBS-ga, pH 7,4. Rakud fikseeriti, lisades igasse süvendisse 4 °C, 80% atsetooni ja inkubeeriti toatemperatuuril 15 minutit. Seejärel eemaldati atsetoon ja plaati kuivatati õhu käes 30 minutit. Iga süvendit loputati PBS-ga, pH 7,4. Igasse süvendisse lisati 50 µl FITC-konjugeeritud PEDV NP monoklonaalset antikeha (SD6-29 kloon, Medgene Labs), mis oli lahjendatud 1:100 PBS-is pH 7,4 ja inkubeeriti 60 minutit 37 °C juures. Plaati pesti neli korda PBS-iga, pH 7,4, jättes viimase pesu plaadile 5 minutiks, seejärel visati ära ja asendati 100 µl PBS-iga, pH 7,4. Seejärel loeti plaadid SpectraMax i3× abil, kasutades SoftMax Pro 6.5 (Molecular Devices, San Jose, CA, USA), kasutades 30 ms säriaega ja 20 um fookuskaugust 541 lainepikkuse jaoks. Proovid, mille kogufluorestsentsi vähenemine (%FR) oli 85% või suurem, klassifitseeriti neutraliseerivate antikehade suhtes positiivseteks [2]. Fluorestsentsi summaarne vähenemine arvutati kui 100 − ([proovi keskmine fluorestsentsi koguintensiivsus/keskmine negatiivse kontrolli kogufluorestsentsi intensiivsus]) × 100). Suurem summaarne fluorestsentsi vähenemine näitab suuremat neutraliseerivate antikehade kontsentratsiooni proovides. Positiivsete ja negatiivsete seerumiproovide näide on saadaval lisamaterjalides.
2.7. Diagnostilised omadused: tundlikkus ja spetsiifilisus ning positiivsed ja negatiivsed ennustavad väärtused
Diagnostiline tundlikkus ja spetsiifilisus arvutati HTNT jaoks, kasutades FR-i % piirväärtust 70, 75, 80, 85 ja 90, ja FFN-i puhul, kasutades optimeeritud piiri määramiseks proovi lahjenduspiire 20, 40, 80 ja 160. Optimeeritud määratleti kui piir, kus diagnostiline spetsiifilisus maksimeeritakse diagnostilise spetsiifilisuse minimaalse kadumisega. KONTROLL- ja POST-rühmade esimesest kahest proovivõtupunktist valiti seitsmekümne kuue teadaoleva PEDV-negatiivse proovi alamhulk. NV-rühma kahest viimasest proovivõtupunktist valiti 36 teadaolevat PEDV-positiivset proovi. Positiivsete proovide määratlemiseks kasutati suuremat kui 85 piirväärtust, mis on kooskõlas testi ISU VDL standardse tööprotseduuriga [17]. Diagnostilist tundlikkust hinnati, jagades teadaolevate positiivsete proovide arvu teadaolevate positiivsete proovide arvuga. Diagnostilist spetsiifilisust hinnati, jagades teadaolevate negatiivsete proovide arvu, mille tulemus oli negatiivne, teadaolevate negatiivsete proovide arvuga. Katse võrdlemiseks valiti piir, mis optimeeris diagnostilist spetsiifilisust ja tundlikkust. Selle uuringu jaoks maksimeeriti diagnostiline spetsiifilisus (DSp) ja tundlikkus (DSe), kus tundlikkuse ja spetsiifilisuse väärtuste erinevuse absoluutväärtus on väikseim. Positiivset ennustavat väärtust (PPV) hinnati, jagades teadaolevate positiivsete proovide (TP) arvu testi positiivsete proovide koguarvuga (TP pluss valepositiivne [FP]). Negatiivse ennustusväärtuse (NPV) määramiseks jagati negatiivseks osutunud teadaolevate negatiivsete proovide (TN) arv testi negatiivsete proovide koguarvuga (TN pluss valenegatiivne [FN]).

cistanche tubulosa - parandab immuunsüsteemi
Cistanche Enhance Immunity toodete vaatamiseks klõpsake siin
【Küsi lisa】 E-post:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2.8. Statistiline analüüs
Selles uuringus ei olnud ebamääraseid tulemusi ega puuduvaid andmeid. Kõiki andmeid analüüsiti, kasutades SAS-i versiooni 9.4 (SAS Instit. Cary NC). Kasutati 609 vaatlust 6{{10}} seast, kes kuulusid ühte neljast rühmast. Arvestati kahte võimalikku piirväärtust (40 ja 80) FFN-testi jaoks ja võrreldi HTNT 85-ga. Mõlema jaoks sobis lineaarne segaefektide mudel, et selgitada rühma mõju FFN-i ja HTNT-testide kokkuleppele sea-spetsiifilise juhusliku efektiga. Viidi läbi kõik rühmade paaripõhised võrdlusanalüüsid. Lisaks arvutati FFN-analüüsis kasutatud kolmest piirväärtusest kahe puhul Coheni Kappa koefitsient, et määrata FFN-i ja HTNT-testide üldine kokkusobivus. Kapa koefitsiente tõlgendati järgmiselt: vähem kui 0.0, "halb" kokkulepe; vahemikus 0.0 kuni 0.20, "väike" kokkulepe; vahemikus 0.21 kuni {{30}}.40, "õiglane" leping; vahemikus 0,41 kuni 0,60, "mõõdukas" kokkulepe; vahemikus 0,61–0,80, "oluline" kokkulepe; ja vahemikus 0,81 kuni 1,0, "peaaegu täiuslik" kokkulepe [19]. Olulisuseks määrati p Väiksem kui 0,05 või sellega võrdne. Kasti ja vurrude proovid töötati välja R tarkvara abil.
3. Tulemused
Tabelis 1 on näidatud FFN- ja HTNT-testide diagnostiline tundlikkus ja spetsiifilisus valitud piirväärtuste juures. Selle uuringu kahe analüüsi diagnostiline tundlikkus ja spetsiifilisus optimeeriti vastavalt 80% ja 80% FR lahjenduse piiril.
Tabel 1. Diagnostiline tundlikkus (DSe), diagnostiline spetsiifilisus (DSp), positiivne ennustav väärtus (PPV) ja negatiivne ennustav väärtus (NPV) HTNT ja FFN analüüside jaoks, kasutades erinevaid tabeli teises real loetletud piire. Näiteks HTNT testi puhul, mille piirväärtus on 70, on DSe=0.97 (97%), DSP=0.91 (91%), PPV=0.83 ( 83%) ja NPV=0,95 (95%). U=määramata.

Joonisel 1 on kujutatud HTNT tulemuste kast- ja vurrdiagrammid nakatamisjärgsete päevade kaupa uuringuravirühmade kaupa. KONTROLL- ja POST-rühmade proovid (n=76) klassifitseeriti negatiivseteks päevadel −4, 0 ja 7, nagu eeldati, tulenevalt sigade varasemast seisundist. NV rühmal tekkis pärast väljakutset anamnestiline reaktsioon. HTNT tulemuste varieeruvus vähenes, mida näitab väärtuste vahemiku vähenemine mõlemas vaktsineeritud rühmas (PRE ja POST) pärast PEDV-ga nakatamist. Seda vähenenud variatsiooni võib täheldada joonisel 1, kuna POST-i ja PRE-diagrammide vurrud ja kõrvalekalded muutuvad 14 päeva pärast nakatamist lühemaks. Joonisel 2 on kujutatud loomulike logaritmiliselt teisendatud FFN-i tulemuste kast- ja vurrgraafikud päevade kaupa pärast nakatamist ravirühmade kaupa, millel on sarnased tulemused HTNT testiga. Nii HTNT (joonis 1) kui ka FFN (joonis 2) tulemused näitavad vastust nakatamisele ja vaktsineerimisele, mida on näha %FR ja tiitrite suurenemisest mõlemas testis. Ehkki suurusjärgus oli sarnane, vähenes iga testi tulemuste varieeruvus pärast homoloogset väljakutset (NV). Vähenenud varieeruvus ilmnes ka pärast vaktsineerimist (PRE ja POST). See neutraliseerivate antikehade väärtuste kõikumine nädala jooksul pärast kokkupuudet väheneb pärast vaktsineerimist ja homoloogset nakatamist PEDV-ga (joonised 1 ja 2). Neutraliseerivate antikehade varieerumise vähenemise tendents oli sarnane nii vaktsineeritud kui ka homoloogse nakatatud ravirühma mõlema testi tulemustes. PEDV homoloogne nakatamine ja teine vaktsineerimine andis anamnestilise vastuse, tekitades kõrgema neutraliseerivate antikehade taseme, kusjuures sigade erinevused olid väiksemad võrreldes nakatamiseelsete ja vaktsineerimisjärgsete väärtustega, mida mõõdeti mõlema testiga (joonis 1). Diagnostilise tundlikkuse ja spetsiifilisuse analüüsi põhjal valiti 80 (tiiter) ja 85 (%FR) piirväärtused, et analüüsida vastavalt FFN- ja HTNT-testide testi kokkulepet. Kappa test näitas "mõõdukat" vastavust 0,5257 95% usaldusvahemikuga 0,461, 0,5904 katsetest piirväärtuse 80 (tiiter) ja 85 (%FR) jaoks. FFN ja HTNT testid.
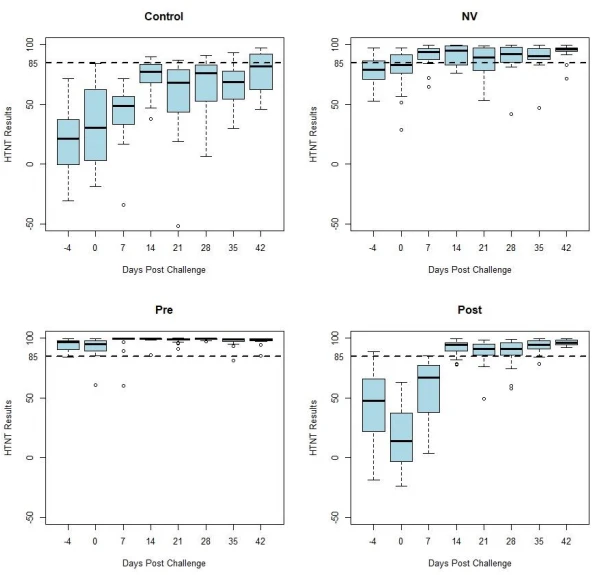
Joonis 1. Iga ravirühma HTNT antikeha vastuse kõverate kast- ja vurrgraafikud päevade kaupa pärast nakatamist. Keskmine riba tähistab tulemuste mediaanväärtust nädala lõikes. Hinged (kasti ülemine ja alumine osa) tähistavad esimest (Q1) ja kolmandat (Q3) kvartiili. Varjutatud piirkond tähistab interkvartiilset vahemikku (IQR). Vurrud määratakse järgmiselt: Ülemine vurr=Q3 + 1.5∗IQR; Alumine vurr=Q1 + 1.5∗IQR. Kui ükski andmepunkt ei ole arvutatud väärtuse juures, on järgmine Q1-le või Q3-le lähim andmepunkt vurrude piir. Avatud ringid (◦) tähistavad kõrvalekaldeid. Lõiget 85 tähistatakse y-teljel punktis 85 oleva katkendjoonega.

Joonis 2. Iga ravirühma FFN-i antikehade vastuse kõverate kast-ja-vurr diagrammid nakatamisjärgsete päevade kaupa. Keskmine riba tähistab tulemuste mediaanväärtust nädala lõikes. Hinged (kasti ülemine ja alumine osa) tähistavad esimest (Q1) ja kolmandat (Q3) kvartiili. Varjutatud piirkond tähistab interkvartiilset vahemikku (IQR). Vurrud määratakse järgmiselt: Ülemine vurr=Q3 + 1.5∗IQR; Alumine vurr=Q1 + 1.5∗IQR. Kui ükski andmepunkt ei ole arvutatud väärtuse juures, on järgmine Q1-le või Q3-le lähim andmepunkt vurrude piir. Avatud ringid (◦) tähistavad kõrvalekaldeid. Lõiget 40 tähistatakse y-teljel punktis ln(40) oleva katkendjoonega.
4. Arutelu
Me oletame, et vähenenud varieeruvus ja anamnestiline vastus on seotud homogeense karja immuunsuse ja kaitsega haiguste eest, kuigi kliinilisi tunnuseid täheldati endiselt PRE rühmas, nagu eelnevalt kirjeldatud [14]. Nende loomade haiguse kliinilist mõju ja tõsidust selle uuringu jaoks ei hinnatud. Haigus avaldub täiskasvanutel ja vastsündinutel erinevalt, vastsündinutel on raskemad kliinilised nähud ja surm kui täiskasvanud loomadel [1,20]. Kuigi ringlevad neutraliseerivate antikehade tasemed üksi ei anna kaitset [21], võib neid kasutada antikehavastuse hindamiseks pärast tahtlikku kokkupuudet või vaktsineerimist karjades. Kui PEDV-le on iseloomulik vireemia puudumine, siis kuni 4 nädala vanustel põrsastel on teatatud vireemiast [22,23]. Seega võivad ringlevad neutraliseerivad antikehad mõjutada haiguse kliinilist kulgu [21]. Kuid laktogeenne immuunsus, täpsemalt IgA rinnanäärme sekretsioonides, oleks põrsaste kaitse täpsem mõõtmine [21]. Selles uuringus kirjeldatud teste saab kasutada seerumi neutraliseerivate antikehade jälgimiseks pärast vaktsineerimist emiste või nooremiste rühmades lisaks rinnanäärme sekretsiooni kogumisele, et testida laktogeenset/sekretoorset IgA-d. Oleks kasulik, kui nendest analüüsidest saadud andmed suudaksid ennustada pärast vaktsineerimist tekkinud laktogeense immuunsuse kogust ja stabiilsust. Seda aga käesolevas uuringus ei analüüsitud. On näidatud, et vaktsineerimise järgsed seerumi IgG antikehade vastused ennustavad kolostraadi IgG vastust, kuid seerumit neutraliseerivate antikehade ja rinnanäärme sekretsiooni antikehade vahel ei olnud seost [15]. Kuigi seerumit neutraliseerivate antikehade ja rinnanäärme sekretsioonide vahel puudus korrelatsioon, ilmnes, et vaktsineeritud loomadel on rinnanäärme sekretsioonides rohkem neutraliseerivaid antikehi kui kontrollloomadel [15]. Seetõttu, nagu toetavad Bjustrom-Kraft et al. [15], kui seerumit neutraliseerivad antikehad on kõrged, võib suureneda ka IgG ja IgA rinnanäärme sekretsioonides. Seega vähendaks seerumiproovide kogumine enne emaste poegimismajja viimist stressi ja valu, mis on põhjustatud sünnitusjärgsest vere ja rinnanäärme sekreedi kogumisest, mis võib emist ja pesakonda negatiivselt mõjutada [24]. Kasutajate jaoks on oluline mõista, kuidas piirväärtus võib mõjutada analüüsi diagnostilist tundlikkust ja spetsiifilisust. Piirväärtuse suurendamine vähendab valepositiivsete tulemuste arvu ja suurendab valenegatiivsete tulemuste arvu. Vastupidi, piirväärtuse vähendamine suurendab valepositiivsete tulemuste arvu ja vähendab valenegatiivsete tulemuste arvu. Need teadmised võimaldavad kasutajal valida, millist piirväärtust oma konkreetses olukorras kasutada. Selle uuringu jaoks, tuginedes selle uuringu tulemustele ja varasematele Sarmento et al. [2], valisime HTNT jaoks 80% FR ja lahjenduse 80 FFN. Nendel piiridel on diagnostiline spetsiifilisus kõrgem HTNT puhul (97%) võrreldes FFN-iga (76%) ja annab HTNT-st kõrgema positiivse ennustava väärtuse kui FFN. Samuti tuleb mõista, et prognoositavad väärtused sõltuvad haiguse levimusest [25, 26]. Selles uuringus oli klassifitseeritud proovide põhjal levimus 32,1% (36 positiivset ja 76 negatiivset proovi). Levimuse suurenedes suureneks ka PPV, kuna testitud loom (proov) on tõenäolisemalt positiivne; kui levimus väheneb, väheneks NPV. Joonised fig 3A ja B illustreerivad seda HTNT ja FFN testide puhul erinevatel piirväärtustel, mida hinnati selles uuringus, järgides Erb [25] kirjeldatud meetodeid. Seetõttu tuleks diagnostiliste tulemuste kaalumisel arvesse võtta analüüsi diagnostilist tundlikkust ja spetsiifilisust ning ennustavate väärtuste kasutamisel mõista levimust rühmas.

Joonis 3. (A). Positiivsed ennustavad väärtused HTNT (mustad jooned) ja FFN (hallid jooned) analüüside jaoks erinevatel piirväärtustel. HTNT puhul ei ole piirväärtust 90 esindatud. (B). Negatiivsed ennustavad väärtused või HTNT (mustad jooned) ja FFN (hallid jooned) testid erinevatel piirväärtustel. FFN-analüüsi puhul ei ole piirväärtust 20 esitatud.
HTNT-l on võrreldes FFN-iga parem diagnostiline tundlikkus ja spetsiifilisus. Antikehade tulemuste analüüsimisel on see ideaalne valepositiivsete ja valenegatiivsete tulemuste arvu minimeerimiseks. Näiteks kui kasutasime FFN-i jaoks piirväärtust 80, täheldasime tundlikkust 97% ja spetsiifilisust 76%. See tähendab, et valenegatiivseid tulemusi oleks vähe, kuid valepositiivseid tulemusi oleks palju. Kui tulemused liigitatakse ekslikult positiivseteks, võib see põhjustada väärtõlgendust, et karjal on PEDV-vastaseid antikehi, kuigi tegelikult neid ei ole. Kuna HTNT-l on kõrgem diagnostiline ja spetsiifilisus erinevates piirides, on see PEDV antikehade tuvastamiseks eelistatav analüüs. Sarmento jt tulemused. [2] näitas FFN-i diagnostilist spetsiifilisust palju kõrgemat ja HTNT-i võrreldavat tundlikkust ja spetsiifilisust. Need diagnostilised testid näitasid kappa-statistika (κ) järgi mõõdukat kokkulepet. Üks κ nõrkus on see, et ühte testi tuleb pidada kullastandardiks. Kahe ebatäiusliku testi võrdlemisel võib see κ tõlgendust moonutada. Selle uuringu jaoks hindasime analüüside diagnostilist jõudlust koos κ-ga, et teha kindlaks, kas test on nõus, kuid sellel võib olla erinev kasulikkus. HTNT täiendav eelis FFN-testi ees on see, et HTNT tulemused arvutatakse pidevate andmete põhjal, võrreldes FFN-i kategooriliste väärtustega (tiitrimisega). HTNT andmete pidev iseloom võimaldab proovide tulemuste suuremat eristamist, et kirjeldada emiste neutraliseerivate antikehade seisundit. Nagu teatasid Sarmento et al. [2], on HTNT-l 96 süvendiga plaadi lugemisaeg lühem, alla 4 minuti, mis võimaldab tulemuste kiiremat töötlemist. Ringlevad süsteemsed antikehad võivad aidata kaasa põrsaste kaitsele PEDV-nakkuste eest [21]. Siiski puudub kirjandus selle kohta, milline kogus emises ringlevat neutraliseerivat antikeha annaks põrsastele PEDV kaitse. Ringlevate antikehade kõrge tase põhjustab ternespiimas kõrgemaid kontsentratsioone ja tagab suurema kaitse. Täiendav hindamine on õigustatud, et teha kindlaks seos proovide kogumise tiinuse ajal ja kolostraalantikehade kaitse vahel PEDV-nakkuse vastu. Laktogeenne ja limaskestade immuunsus on PEDV-ga kokkupuutuvate sigade ellujäämise jaoks ülioluline. Antikehad kogunevad piima soolestiku-MG-sIGA telje kaudu ja suunatakse põrsastele kaitse tagamiseks. Langel et al. [27] leidsid, et teisel trimestril eksponeeritud nooreadel oli tsirkuleerivate IgA, IgG ja neutraliseerivate antikehade tase oluliselt kõrgem kui esimese ja kolmanda trimestri nooreadel. Lisaks on Langel et al. [27] leidsid, et teisel trimestril PEDV-ga kokku puutunud nooremiste põrsaste elulemus oli 100%, võrreldes teiste trimestrite alla 87,2%-ga, mis viitab sellele, et kõrge seerumi IgA, IgG ja neutraliseerivate antikehade sisaldus on seotud põrsaste ellujäämisega. PEDV. Kuigi seerumi antikehad ei paku PEDV-le kaitset, näitavad meie uuringu tulemused, et seerumit neutraliseerivad antikehade tasemed on seotud kaitsega PEDV-nakkuse vastu. Nagu varem teatas Brown et al. [14] PEDV eritub väljaheitega pärast homoloogset nakatumist ja nooremiste vaktsineerimist. Käesolevas uuringus kasutati proove samadelt loomadelt nagu Brown et al. [14]. näitab lisaks, et seerumi neutraliseerivate antikehade suurenemine pärast nakatamist või vaktsineerimist ei mõjuta viiruse leviku mustrit, kuna antikehade tase tõusis pärast nakatamist ja vaktsineerimist. Täiendavad uuringud on õigustatud, et kinnitada, kas väljaheitega eritunud viiruse kogus on seotud seerumis sisalduva neutraliseeriva antikeha kogusega [21].

Tistanche kasulikud omadused meestele - tugevdavad immuunsüsteemi
5. Kokkuvõtted
Selle uuringu nullhüpotees oli, et kahe PEDV-d neutraliseeriva antikeha testi, FFN ja HTNT, diagnostilistes omadustes ei olnud erinevusi. Tulemused näitavad, et need testid ühtivad mõõdukalt kappastatistika põhjal, samas kui nende diagnostilised omadused ja prognoositavad väärtused varieeruvad, lähtudes testi piirväärtusest. Neid analüüse saab kasutada karja vaktsineerimisvastuse mõõtmiseks. Nullhüpoteesi tagasilükkamine näitab, et HTNT on eelistatud test PEDV-d neutraliseerivate antikehade tuvastamiseks seerumis. Pärast vaktsineerimist nii PRE kui ka POST rühmas leiti selles uuringus, et enamik tulemusi on positiivsed. PRE rühmas järgnes väljakutsele ka tulemuste erinevuse vähenemine. Need tulemused viitavad sellele, et sigade praktikud võivad mõõta seerumit neutraliseerivaid antikehi, et teha kindlaks, kas PEDV vaktsiine manustatakse karjas õigesti.
Viited
1. Saif, L.; Wang, Q.; Vlasova, A.; Jung, K.; Xiao, S. Coronaviruses. In Diseases of Swine, 11. väljaanne; Zimmerman, JJ, toim; Wiley Blackwell: Hoboken, NJ, USA, 2019.
2. Sarmento, LV; Poonsuk, K.; Tian, L.; Mora-Diaz, JC; Main, RG; Baum, DH; Zimmerman, JJ; Gimenez-Lirola, LG Sigade epideemilise kõhulahtisuse viirust neutraliseeriva antikeha tuvastamine suure läbilaskevõimega pilditsütomeetria abil. J. Vet. Diagnoos. Uurige. 2020, 32, 324–328. [CrossRef]
3. Stevenson, GW; Hoang, H.; Schwartz, KJ; Burrough, ER; Sun, D.; Madson, D.; Cooper, VL; Pillatzki, A.; Gauger, P.; Schmitt, BJ; et al. Sigade epideemilise kõhulahtisuse viiruse tekkimine Ameerika Ühendriikides: kliinilised nähud, kahjustused ja viiruse genoomsed järjestused. J. Vet. Diagnoos. Uurige. 2013, 25, 649–654. [CrossRef]
4. Kim, Y.; Yang, M.; Goyal, SM; Cheeran, MC; Torremorell, M. Bioohutusmeetmete hindamine sigade epideemilise kõhulahtisuse viiruse kaudse edasikandumise vältimiseks. BMC Vet. Res. 2017, 13, 89. [CrossRef]
5. Laul, DS; Oh, JS; Kang, BK; Yang, JS; Kuu, HJ; Yoo, HS; Jang, YS; Park, BK Vero raku nõrgestatud sea epideemilise kõhulahtisuse viiruse DR13 tüve suukaudne efektiivsus. Res. Vet. Sci. 2007, 82, 134–140. [CrossRef] [PubMed]
6. de Arriba, ML; Carvajal, A.; Pozo, J.; Rubio, P. Limaskestade ja süsteemsete isotüübispetsiifiliste antikehade vastused ja kaitse tavalistel sigadel, kes on kokku puutunud virulentse või nõrgestatud sigade epideemilise diarröa viirusega. Vet. Immunol. Immunopatool. 2002, 85, 85–97. [CrossRef] [PubMed]
7. Furukawa, S.; Kuroda, Y.; Sugiyama, A. Platsenta histoloogilise struktuuri võrdlus katseloomadel. J. Toxicol. Pathol. 2014, 27, 11–18. [CrossRef] [PubMed]
8. Bourne, FJ; Curtis, J. Immunoglobiinide IgG, IgA ja IgM ülekandumine emise seerumist ternespiima ja piima. Immunology, 1973, 24, 157–162. [PubMed]
9. Parren, PW; Burton, DR Antikehade viirusevastane toime in vitro ja in vivo. Adv. Immunol. 2001, 77, 195–262. [CrossRef]
10. Bjustrom-Kraft, J.; Woodard, K.; Gimenez-Lirola, L.; Rotolo, M.; Wang, C.; Sun, Y.; Lasley, P.; Zhang, J.; Baum, D.; Gauger, P.; et al. Sigade epideemilise kõhulahtisuse viiruse (PEDV) tuvastamine ja antikehade vastus kaubanduslikult kasvavatel sigadel. BMC Vet. Res. 2016, 12, 99. [CrossRef]
11. Oh, JS; Song, DS; Yang, JS; Laul, JY; Kuu, HJ; Kim, TY; Park, BK Ensüümiga seotud immunosorbentanalüüsi võrdlus seerumi neutralisatsiooni testiga sigade epideemilise kõhulahtisuse viirusnakkuse serodiagnostikaks. J. Vet. Sci. 2005, 6, 349–352. [CrossRef]
12. Okda, F.; Liu, X.; Singrey, A.; Clement, T.; Nelson, J.; Christopher-Hennings, J.; Nelson, EA; Lawson, S. Kaudse ELISA, blokeeriva ELISA, fluorestseeruva mikrosfääri immuunanalüüsi ja fluorestseeruva fookuse neutraliseerimise testi väljatöötamine Põhja-Ameerika sigade epideemilise kõhulahtisuse viiruse tüvedega kokkupuute seroloogiliseks hindamiseks. BMC Vet. Res. 2015, 11, 180. [CrossRef] [PubMed]
13. Chen, Q.; Li, G.; Stasko, J.; Thomas, JT; Stensland, WR; Pillatzki, AE; Gauger, arvuti; Schwartz, KJ; Madson, D.; Yoon, KJ; et al. 2013. aasta sigade haiguspuhanguga Ameerika Ühendriikides seotud sigade epideemilise kõhulahtisuse viiruste eraldamine ja iseloomustamine. J. Clin. Microbiol. 2014, 52, 234–243. [CrossRef]
14. Brown, J.; Rademacher, C.; Baker, S. Kaubandusliku sigade epideemilise kõhulahtisuse viiruse vaktsiini efektiivsus viiruse leviku kestuse vähendamisel nooremistel. JSHAP 2019, 27, 256–264.
15. Bjustrom-Kraft, J.; Woodard, K.; Giménez-Lirola, L. Seerumi ja rinnanäärme sekretsiooni antikehavastused sigade epideemilise diarröa-immuunsete nooremiste puhul pärast sigade epideemia kõhulahtisuse vaktsineerimist. JSHAP 2018, 26, 34–40.
16. Iowa osariigi ülikool. Sigade epideemilise kõhulahtisuse viiruse (PEDV) fluorestsentsfookuse neutraliseerimise (FFN) testi protseduur. Seroloogia 2017, 1–7.
17. Iowa osariigi ülikool. Sigade epideemilise kõhulahtisuse viiruse (PEDV) suure läbilaskevõimega viiruse neutraliseerimistesti (HTNT) protseduur. Seroloogia 2017, 1–16.
18. Hierholzer, JC; Killington, RA; Kangro, HO; Mahy, BWJ viroloogiameetodite käsiraamat; Academic Press: London, UK, 1996; lk. 21.
19. Thrusfield, M. Veterinary Epidemiology, 2. väljaanne; Blackwell Science LTD: Hoboken, NJ, USA, 1995; lk. 479.
20. Lee, C. Sigade epideemia diarröa viirus: esilekerkiv ja uuesti esile kerkiv sigade episootiline viirus. Virol. J. 2015, 12, 193. [CrossRef]
21. Poonsuk, K.; Gimenez-Lirola, LG; Zhang, J.; Arruda, P.; Chen, Q.; Correa da Silva Carrion, L.; Magtoto, R.; Pineyro, P.; Sarmento, L.; Wang, C.; et al. Kas ringlevad antikehad mängivad rolli põrsaste kaitsmisel sigade epideemilise kõhulahtisuse viiruse eest? PLoS ONE 2016, 11, e0153041. [CrossRef]
22. Niederwerder, MC; Nietfeld, JC; Bai, J.; Peddireddi, L.; Breazeale, B.; Anderson, J.; Kerrigan, MA; An, B.; Oberst, RD; Crawford, K.; et al. Sigade epideemilise kõhulahtisuse viiruse kudede lokaliseerimine, levik, viiruse kandumine, antikehade vastus ja aerosoolide ülekandmine pärast 4-nädalaste söötmissigade nakatamist. J. Vet. Diagnoos. Investeeri. 2016, 28, 671–678. [CrossRef]
23. Madson, DM; Arruda, PH; Magstadt, DR; Burrough, ER; Hoang, H.; Sun, D.; Bower, LP; Bhandari, M.; Gauger, arvuti; Stevenson, GW; et al. Sigade epideemilise kõhulahtisuse viiruse iseloomustus isoleerib USA/Iowa/18984/2013 nakkuse 1-ühepäevastel keisrilõikest saadud ternespiimast ilma jäänud põrsastel. Vet. Pathol. 2016, 53, 44–52. [CrossRef]
24. Mainau, E.; Manteca, X. Lehmade ja emiste poegimisest põhjustatud valu ja ebamugavustunne. Rakendus Anim. Behav. Sci. 2011, 135, 241–251. [CrossRef]
25. Erb, HN Eelnev tõenäosus (eelnevalt parim hinnang) mõjutab diagnostiliste testide ennustavaid väärtusi. Vet. Clin. Pathol. 2011, 40, 154–158. [CrossRef] [PubMed]
26. Tenny, S.; Hoffman, MR levimus. StatPearlsis; StatPearls Publishing: Treasure Island, FL, USA, 2022. 27. Langel, SN; Paim, FC; Alhamo, MA; Buckley, A.; Van Geelen, A.; Lager, KM; Vlasova, AN; Saif, LJ Stage of Gestation at Porcine Epidemic Diarrhea Virus Infection of Pregnant Swine Impacts Maternal Immunity and laktogenic Immune Protection of Vastsündinud põrsad. Esiosa. Immunol. 2019, 10, 727. [CrossRef] [PubMed]
Ju gjithashtu mund të pëlqeni
-

Viinamarjaseemne ekstrakt
-

Cistanche: võti mälu parandamiseks ja Alzheimeri tõve enn...
-
Wecistanche Black Platinum 50 kraadi
-
Cistanche toidulisand, mis parandab seksuaalset jõudlust ...
-

Cistanche toidulisand energiavarustus fenüületanoidglükos...
-

Taimsed Cistanche toidulisandite kapslid Glükosiidid kokk...