Immuunsuse roll SARS-CoV-2 nakkuse patogeneesis ja COVID-19 vaktsiinide tekitatud kaitses eri vanuserühmades, 2. osa
May 10, 2023
3. Laste immuunvastus erinevat tüüpi vaktsiinidele
Praeguseks on vähe muret tekitatud lastel levinud COVID{0}} vaktsiinide (Pfizer-BioNTech, Moderna ja COVAVAX) pärast, võttes arvesse, et laste immuunvastus on tugevam kui täiskasvanutel (vt allpool jaotist 3.2) [44,63,64]. See kajastub vaktsineerimise ajal süstekoha valu ja turse suurenemises mõne päeva jooksul ning võimaliku kerge kuni mõõduka palavikuga.
Kõik vanuserühmad, alates ühepäevastest vastsündinutest kuni 15-aastaste lasteni, on COVID-19 nakkusele vastuvõtlikud. Laste immuunsüsteemi hea pädevuse tõttu näib haigus olevat lastel vähem raske kui täiskasvanutel. On teatatud, et 21 protsendil lastest ilmnevad COVID-19 ilmsed kliinilised ilmingud võrreldes 69 protsendiga täiskasvanutest. Lisaks on leitud, et alla 15-aastased lapsed on vähem nakkavad kui täiskasvanud, kuna neil on tavaliselt väiksem viiruskoormus. Lastel on ka sagedased hingamisteede viirusinfektsioonid, sealhulgas teiste koroonaviirustega, ja erinevat tüüpi vaktsineerimised, nagu BCG, võivad esile kutsuda treenitud kaasasündinud immuunsuse (vt allpool lõik 4.1) [5,68]. BCG pakub ristkaitset teiste patogeenide (va Mycobacterium tuberculosis) vastu, nagu SARS-CoV{13}} nakkus [68]. BCG-l on immunomoduleerivad omadused, mis võivad indutseerida nii rakulist immuunvastust kui ka kaasasündinud immuunsüsteemi komponentide, nagu monotsüütide, makrofaagide ja NK-rakkude aktiveerimist [5,68].
Lapse immuunvastuse ja immuunsuse vahel on tihe seos. Immuunvastus viitab laste immuunsüsteemi kaitsereaktsioonile infektsioonidele, stiimulitele või võõrainetele, mis sageli väljenduvad põletikuliste reaktsioonidena, antikehade tootmisena jne. Immuunsus viitab laste immuunsüsteemi võimele seista vastu erinevatele patogeensetele mikroorganismidele ja võõrkehad, sealhulgas rakuline immuunsus ja humoraalne immuunsus. Immuunsuse parandamiseks saab laste immuunvastust tugevdada erinevate vahenditega, nagu mitmekordne kokkupuude patogeensete mikroorganismidega, vaktsineerimine jne. Küps immuunsüsteem suudab tõhusalt toime tulla erinevate patogeensete mikroorganismidega ja ennetada haiguste teket.
Seega, juhendades lapsi õigesti immuunvastust tugevdama, saavad nad parandada oma immuunsust ja vähendada nakkushaigustesse haigestumist. Kuid üliaktiivne immuunvastus võib avaldada ka kahjulikku mõju lapse tervisele. Liigne põletikuline reaktsioon võib põhjustada koekahjustusi ja elundite talitlushäireid, mis mõjutavad laste kasvu ja arengut. Seetõttu tuleks laste immuunvastuse tugevdamise suunamisel läbi viia tõhusat kontrolli vastavalt konkreetsele olukorrale ning immuunvastuse ja immuunsuse suhe peaks olema mõistlikult tasakaalus. Sellest vaatenurgast peame ka meie, täiskasvanud, oma immuunsust parandama. Cistanche võib oluliselt parandada meie keha immuunsust.
Klõpsake Cistanche'i kasulikkust tervisele
3.1. Immuunvastus COVID{2}} vaktsiinidele
COVID-19 vaktsiinid käivitavad immunoloogilise vastuse. mRNA-põhised adenoviirusvektorid või inaktiveeritud viirused võivad tekitada koordineeritud kaasasündinud ja adaptiivse vastuse, vähendades konkreetselt tõelise SARS-CoV-2 nakkuse põhjustatud kahjustusi [69,70].
Kaasasündinud immuunvastus on esimene kaitseliin SARS-CoV-2 vastu. APC-d, sealhulgas monotsüüdid, makrofaagid ja dendriitrakud (DC-d), võivad SARS-CoV-2 poolt genereeritud PAMP-e ära tunda oma mustrituvastusretseptorite (PRR-ide), sealhulgas TLR3 ja -7 kaudu. See suurendab rakusiseste signaaliradade aktiivsust, mille tulemuseks on I ja III tüüpi interferoonide (IFN) tootmine, mis omakorda julgustavad kaasasündinud immuunrakke tootma põletikueelseid tsütokiine ja kemokiine. See põhjustab neutrofiilide, rohkemate APC-de ja teiste kaasasündinud immuunrakkude, näiteks looduslike tapjarakkude (NK) värbamist ja aktiveerimist [71]. Kõigil juhtudel stimuleerib teravikvalgu tuvastamine kaasasündinud immuunsüsteemi ja interferooni radasid, mis näitab viirusevastaseid omadusi ja põhjustab tsütolüütiliste T-rakkude ja SARS-CoV-vastaste antikehade arvu suurenemist-2 [72].
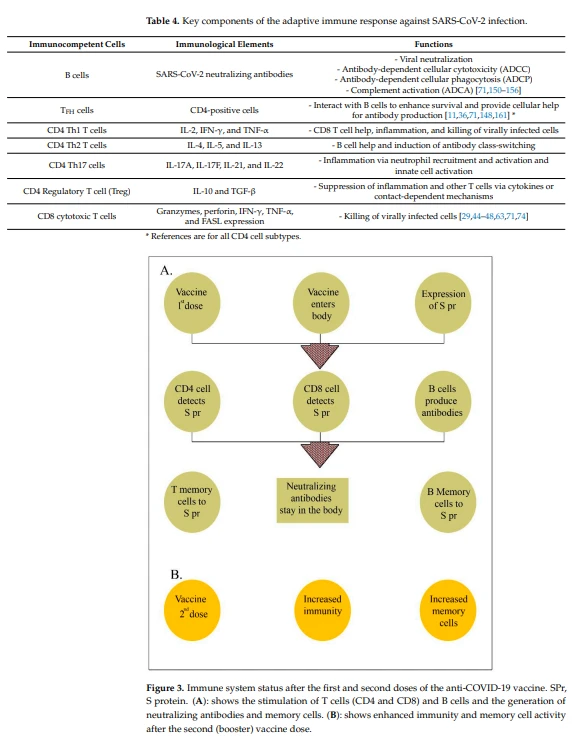
COVID-19-vastase vaktsineerimise ajal vallandub adaptiivne immuunvastus pärast viiruse omastamist ja antigeeni töötlemist APC-de poolt. Need rakud edastavad viiruse antigeeni B-rakkudele, mis seejärel diferentseeruvad plasmarakkudeks, mis toodavad antikehi. Neutraliseerivad antikehad (nAb-d) kinnituvad mitmete viirusvalkude, sealhulgas spike (S) valgu külge, ja neutraliseerivad nende efektiivsust. Teiste antikehade poolt vahendatud viirusevastaste toimete hulka kuuluvad antikehast sõltuv rakuline tsütotoksilisus, antikehast sõltuv rakuline fagotsütoos ja antikehast sõltuv komplemendi aktivatsioon [71–73].
Tsütotoksilised CD8 pluss T-lümfotsüüdid (tapjarakud) hävitavad viirusega nakatunud rakud, tekitades granüüme ja perforiini ning ekspresseerides Fas ligandi (FasL). Kõik need meetodid suurendavad viiruseosakeste eemaldamist rakusurma kaudu. CD4 pluss T-rakkude populatsioonid on samuti seotud SARS-CoV-2 immuunvastusega. Follikulaarsed abistaja T-rakud (TFH) ja Th2 CD4 pluss T-rakud aitavad mõlemad B-rakke spetsiifiliste antikehade genereerimisel. Lisaks aitavad Th1 ja Th17 CD4 pluss T-rakud kaasa põletikulisele vastusele ja viiruse eliminatsioonile. SARS-CoV{10}} nakkuse või vaktsineerimise korral reguleerivad CD4 pluss regulatoorsed T-rakud immuunsüsteemi põletikuvastaste tsütokiinide tootmise ja kontaktvahendatud raku supressiooni kaudu [71].
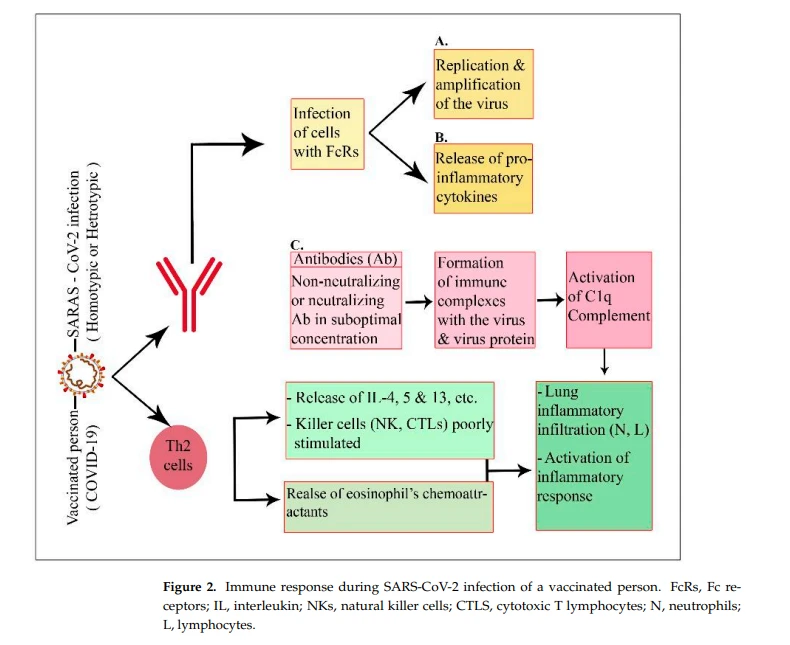
Kui homoloogne viirus siseneb füsioloogilistes tingimustes nakatatud kehasse, neutraliseeritakse või elimineeritakse see vaktsiinist indutseeritud neutraliseerivate antikehade (Abs) ja/või teatud T-rakkude poolt. Vaktsiiniga seotud haiguste intensiivistamise kontekstis kutsuvad vaktsiinid esile valdavalt mitteneutraliseerivaid Ab-sid või neutraliseerivate Ab-de ja/või 2. tüüpi T-abistajarakkude (Th2-raku) vastuseid. Kui need immuniseeritud isikud puutuvad kokku homotüüpiliste või heterotüüpiliste serotüüpsete viirustega, tunnevad antikehad koheselt ära patogeenid ja põhjustavad antikehast sõltuvat haigust (joonis 2). Viiruse-antikeha kompleksid, mis seonduvad rakkude, näiteks dendriitrakkude ja monotsüütidega Fc retseptoriga (FcR), mis seejärel sisenevad ADE kaudu internaliseerumisse, võivad aktiveerida kolm rada. Esmasel nakatumisel võib viirus esile kutsuda pahaloomulise immunoloogilise vastuse, mille tulemuseks on põletikueelsete tsütokiinide (IL-1ß, IL-6, IL-8, IL-17, ja TNF-) (joonised 1 ja 2) [12,69].
Teiseks võib komplekside loomine aktiveerida klassikalise komplemendi, mis põhjustab põletikuliste reaktsioonide sagenemist. Kolmandaks võib see vaktsiiniga seotud haiguse tugevnemine hõlmata ka kallutatud immuunvastust, mille tulemuseks on teatud antikehade isotüüpide moodustumine. Lisaks eritavad Th2 rakud eosinofiilide kemoatraktanti, põhjustades eosinofiilide infiltratsiooni ja põletikueelset tsütokiini sünteesi kopsudes. Kõik need kolm teed aitavad kaasa ägeda kopsukahjustuse või ägeda respiratoorse distressi sündroomi tekkele. Tasub mainida, et looduslikud tapjarakud (NK) ja CD8 pluss tsütotoksilised T-lümfotsüüdid on Th2--rakkude moonutatud immuunvastustes halvasti stimuleeritud [74].
3.2. COVID-19-vastaste vaktsiinide ohutus imikueast noorukieani
Erinevate COVID{1}}-vastaste vaktsiinide tõhususe ja ohutuse mõistmiseks liigitatakse nende mõju ja tekkiv kaitsev immuunsus vaktsiini tüübi järgi [69–72].
3.2.1. Nõrgestatud elusvaktsiinid
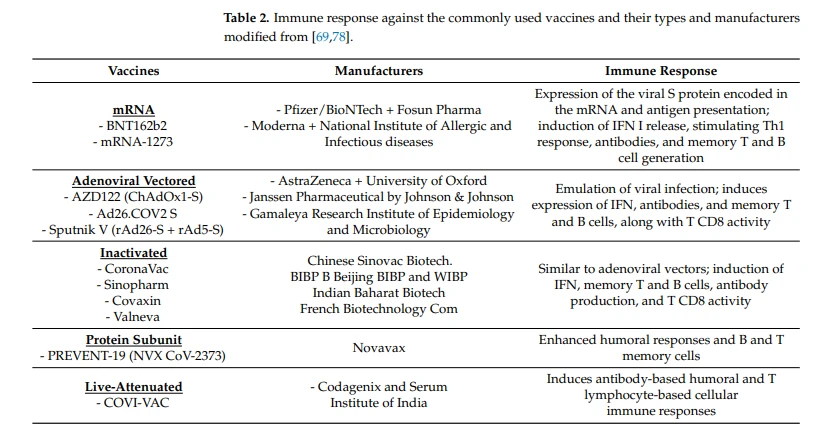
Nõrgestatud elusvaktsiinid valmistatakse kogu SARS-CoV-2 viirusest ja neil on võime stimuleerida immuunsüsteemi, kutsudes esile TLR-e. Nõrgestatud vaktsiiniversioonide loomine võib stimuleerida kaasasündinud immuunsuse TLR-e, nagu TLR3, TLR7/8 ja TLR9. See aktiveerimine võib ületada lõhe viimast tüüpi immuunsusega adaptiivse immuunsuse vahel, mis hõlmab B-rakke, CD4 abistaja-T-rakke ja CD8 tsütotoksilisi T-rakke [11,69]. Intranasaalsed COVID{12}}-vastased vaktsiinid võivad olla selleks otstarbeks sobivad. Limaskesta tekitatud immuunsus võib kaitsta ülemisi hingamisteid SARS-CoV{15}} nakkuse eest. Codagenixi ettevõte koos India seerumi instituudiga tootis modifitseeritud SARSCoV-2 viirust (elusnõrgestatud) intranasaalse vaktsiinina (COVI-VAC), mis on kliinilises uuringus (tabel 2) [69,70].
3.2.2. Inaktiveeritud vaktsiinid
Inaktiveeritud vaktsiine on lihtne valmistada kogu SARS-CoV-2 viirusest, need ekspresseerivad konformatsioonist sõltuvaid antigeenseid epitoope ja neid saab kombineerida adjuvantidega, et suurendada nende immunogeensust. Need vaktsiinid tekitavad vähem tugevat immuunvastust kui teist tüüpi vaktsiinid ja on vaja korduva/lisaannuseid, kuna need ei tekita pikaajalist immuunsust; seega on uuesti nakatumine võimalik. Kuna immuunsüsteemile esitatakse kogu viirus, võivad immuunvastused olla sihitud mitte ainult piigivalgule, vaid ka teistele viiruseepitoopidele. Nende vaktsiinide tõhusus ja ohutus on laboris tõestatud [50,69]. Kõige tavalisemad kliinilises kasutuses olevad inaktiveeritud vaktsiinid on Sinovac (Coronavac), Sinopharm (BIBP ja WIBP), Covaxin ja Valneva SE (tabel 2) [69–74].

3.2.3. DNA vaktsiinid
DNA vaktsiinid suurendavad humoraalset ja rakulist immuunvastust ning on stabiilsed ja kergesti valmistatavad suurtes kogustes. Hiljuti kasutatud DNA vaktsiin on ZyCoV, mille vaktsiini efektiivsus on 66,6 protsenti [75].
3.2.4. RNA vaktsiinid
Nii Pfizer/BioNTechi kui ka Moderna vaktsiinid kasutavad SARS-CoV-2 viiruse geneetilise koodi kehasse edastamiseks mRNA tehnoloogiat ilma keharakke muutmata. See on vastupidine DNA-põhisele vaktsineerimisele, mis võib põhjustada peremeesorganismi genoomseid anomaaliaid. mRNA-põhised vaktsiinid on tõhus ja ohutu viis tugevate immuunvastuste esilekutsumiseks, mis võivad sarnaneda tõelise SARS-CoV{5}} infektsiooniga. Süstekoha lähedal võtavad antigeeni esitlevad rakud (makrofaagid ja dendriitrakud) manustatud mRNA vaktsiini. Nendes rakkudes kasutab mRNA peremeesraku ribosoome SARS-CoV-2 spike-valgu valmistamiseks, mis seejärel ekspresseerub raku pinnal, kutsudes esile humoraalse ja rakulise immuunvastuse [76,77].
3.2.5. Subühiku vaktsiinid
Subühikvaktsiinid ei sisalda viirusosakeste eluskomponente. Need on ohutud ja neil on vähem kõrvaltoimeid kui teised vaktsiinid. Nende vaktsiinide valmistamisel kasutatakse SARSCoV{0}} viiruse valke või valgufragmente, eriti S-valku [69,78]. Need vaktsiinid on nõrga immunogeensusega, ohutud ja neil on vähe kõrvaltoimeid. Adjuvante (alumiiniumsulfaat "maarjas" üksi või maarjas koos CpG-ga) segatakse nendega, et tugevdada immuunvastust nende vastu [69].
3.2.6. Vektori vaktsiinid
Vektorvaktsiinid võivad nakatada otse antigeeni esitlevaid rakke (APC). Need vaktsiinid on füüsiliselt ja geneetiliselt stabiilsed. Neid vaktsiine peetakse nõrgestatud elusvaktsiinideks, mis võivad integreeruda peremeesgenoomi, ja seetõttu on tekitatud muret võimaliku vähi arengu pärast [77]. Need tekitavad tugeva immuunvastuse SARS-CoV-2 viiruse vastu ja neid ei soovitata kasutada imikutel ega lastel, samuti ei kasutata neid rasedatel ega immuunpuudulikkusega inimestel.
Erinevate vaktsiinide valmistamiseks on kasutatud üheksat tüüpi viirusvektoreid, sealhulgas viit mittereplitseeruvat ja nelja replitseeruvat vektorit. Eelmisse rühma, mida kasutatakse COVID-19 vaktsiinide valmistamisel, kuuluvad AZD 12232 (Oxford/AstraZeneca), GNJ-7836735 (Johnson & Johnson), Ad5-nCoV (CanSino Biologics). Hiina) ning Ad5 ja Ad26 (Venemaa Gamaleja uurimisinstituudi Sputnik ja Sputnik Light vaktsiinid) [69,70]. Viimasesse rühma kuuluvad erinevad adenoviiruse vektorid (Adv), modifitseeritud vaktsiiniaviirus Ankara (MVA), paragripiviiruse vektor (PIV) ja lentiviirus (LV). Need replitseeruvad vektorid on konstrueeritud nende replikatsioonivõime kustutamise teel geeni eemaldamise teel. Ühtegi neist vektoritest ei ole aga kasutatud COVID-19 vaktsiinide valmistamiseks, kuna need kutsuvad esile tugeva ja püsiva immuunvastuse ning tekitavad vaigistatud viirusosakesi [78]. Nende tõhusus tuleneb nende võimest rakke nakatada, mis võimaldab neil esile kutsuda olulisi immunoloogilisi reaktsioone. Siiski võib vektori suhtes olla juba olemasolev immuunsus ja peremeesorganismi immuunsüsteemiga võib kokku puutuda vaid väike arv CoV antigeene. Integratsioon peremeesgenoomi võib põhjustada vähki ja vektori suhtes uuesti arenenud immuunsus on puuduseks [69].

3.3. Erinevad immunoloogilised mehhanismid pärast COVID{2}} vaktsineerimist
Tabelis 2 on kokku võetud immuunvastuse erinevad mehhanismid erinevat tüüpi levinud globaalselt levinud vaktsiinide vastu. Näidatud on neli mehhanismi: mRNA, vektorvaktsiinide, inaktiveeritud vaktsiinide, valgu subühikute vaktsiinide ja nõrgestatud elusvaktsiinide vastu. Igat tüüpi vaktsiinid loovad kaitsemehhanisme SARS-CoV-2 vastu, kuid need on erineva ulatusega ja erineva efektiivsusega [72,73,79].
3.4. 5–15-aastaste laste vaktsineerimine
USA FDA on andnud erakorralise loa (EUA) kolmele lastel kasutamiseks mõeldud vaktsiinile: kahele mRNA vaktsiinile (Pfizer/BioNTech ja Moderna) ja ühele vektorile, Ad26 vaktsiinile (Johnson & Johnson). 10. mail 2021 kiitis FDA heaks vaktsiini Pfizer/BioNTech kasutamiseks noorukitel vanuses 12–15 aastat ja 29. oktoobril 2021. aastal 5–11-aastastele lastele [2]. 5–11-aastastele lastele manustatakse vaktsiine Pfizer/BioNTech (BNT 162b2) ja Moderna (mRNA 1273) kahes annuses, kolmenädalase vahega, väiksemates annustes (10 µg) kui vanematel lastel (30 µg) [3,80,81]. See vaktsineerimisprotokoll kaitseb ligikaudu 91 protsenti nendest lastest [3,81]. Selle vanuserühma vaktsineerimine ei pruugi tekitada tugevat immuunvastust ja seetõttu soovitab CDC manustada täiendava annuse 28 päeva pärast vaktsiini teist annust [3,81].
For children aged 12–15 years, again, the Pfizer/BioNTech vaccine is given in two doses, three weeks apart (or six weeks apart), but in doses similar to that given to adults (>16 aastat). See vaktsineerimine kaitseb selles lasterühmas 100 protsenti. Indias on Covaxini adjuvandiga inaktiveeritud vaktsiin ja ZyCoV (uudne DNA) vaktsiin heaks kiidetud kasutamiseks ka 12–17-aastastel lastel [3, 75, 80, 81].
Lisaks on Hiina ametivõimud heaks kiitnud kahe inaktiveeritud vaktsiini (Sinovac-CoronaVac ja BBIBp-CorV) kasutamise juba kolmeaastastel lastel [81]. Inaktiveeritud vaktsiinid sobivad rohkem väga väikestele lastele, kuna nende immuunsüsteem on alles arenemisprotsessis täiskasvanuks (vt eespool). COVID-19 vaktsiinide kohta on käimas mitmeid katseid juba kuue kuu vanuste imikute jaoks, kuid kinnitatud tulemusi pole veel avaldatud [81].
Kõigist vaktsiinide alatüüpidest on mRNA-põhised vaktsiinid kõige edukamad, kuna need on ohutumad, võivad kutsuda esile suurema immuunvastuse ja jäljendada looduslikku infektsiooni [69–73, 76, 79]. mRNA vaktsiinide puuduseks on see, et nad vajavad erilisi ladustamis- ja saatmistingimusi. Kuna mitteaktiivsed vaktsineerimised sisaldavad täielikku viirusrakku, on nende kõrvaltoimed tõsised ja immuunsuse säilitamiseks on vaja kordusannust (tabel 2) [4, 69, 71].
3.5. Vaktsineerimine alla viieaastastele lastele
Noorte immuunsüsteemis toimub arenguprotsess, samal ajal kui vaktsineerimine pakub kaitset ja mõlemad võivad ilmneda samaaegselt [4]. USA Toidu- ja Ravimiamet kiitis 17. juunil 2. juunil heaks vaktsiinide Moderna ja Pfizer/BioNTech COVID-19 erakorralise kasutamise COVID-19 ennetamiseks alla kuue kuu vanustel imikutel. 12}}22 [82]. Lisaks hakkas Austraalia ravikaupade administratsioon (TGA) 3. augustil 2022 hindama ettevõtte Pfizer Australia Pty Ltd. taotlust suurendada COVID{8}} vaktsiini (COMIRNATY) kasutamist kolmeannuseliseni. lastele vanuses kuus kuud kuni alla viie aasta [83]. Väiksemate laste puhul hinnatakse väiksemat vaktsiiniannust (3 µg 0,2 ml-s). Seda võrrelduna annusega 10 µg 5–11-aastastele ja 30 µg 12-aastastele ja vanematele (vt ülaltoodud jaotist 3.4). Lisaks andis TGA 19. juulil 2022 ajutise loa Moderna COVID{24}} vaktsiini (SPIKEVAX) pediaatrilise annuse kasutamiseks kuue kuu kuni alla kuue aasta vanuste laste puhul.
Alla viieaastased lapsed on koroonaviiruse suhtes palju vähem haavatavad kui täiskasvanud, kuid nad ei ole haavatavad selle tõsiste tagajärgede suhtes. Ameerika Ühendriikides on COVID-i tõttu surnud üle 460 alla viieaastase lapse-19 [2]. Need lapsed on surnud sagedamini kui lapsed vanuses 5–11 aastat. Seetõttu on sellele lasterühmale COVID-19 vaktsiinide manustamise kohta raske otsuseid langetada. On masendav teatada lastest, kes on surnud COVID-i,{6}} kuna nad olid vaktsineerimata või neil oli vaktsineerimisega seotud tüsistusi [2,81,84].
Uute variantide tuvastamine, millel on suurenenud ülekanduvus ja vähenenud tundlikkus vaktsiinide suhtes ning vähenenud võime ennetada nakatumist, on viinud keskendumiseni vaktsineeritud rühmadele, kus immuunvastus võib olla kahjustatud [85].
Nende laste vaktsineerimine võib vähendada haiguse levikut ja aidata kaitsta teisi haavatavaid inimesi. Delta ja omikroni variantide esilekerkimist silmas pidades näib karja immuunsuse kaitse olevat piiratud väärtusega. Näib, et viirus jääb inimkonna juurde ja parim praktiline kaitsemeetod on vaktsineerimine [85]. Praegu võib vaktsiini soovitada alla viieaastastele lastele nii seetõttu, et see on lubatud kasutamiseks, kui ka seetõttu, et olemasolevad andmed näitavad vastuvõetavat ohutuse ja efektiivsuse taset. On rahustav, et raskeid tagajärgi esineb lastel harva, kuid neid esineb. Olemasolevad ülemaailmsed andmed näitavad siiski, et 5–18-aastaste laste vaktsineerimisega seotud riske esineb, kuid väga piiratud ulatuses. Sarnaselt järgivad andmed alla viieaastaste laste kohta sama skeemi, seega on soovitatav vaktsineerida kõiki lapsi, välja arvatud juhul, kui neil on vastunäidustusi [85,86].
3.6. SARS-CoV-2 viroloogia ja loodud immuunsus viiruskomponentide vastu
Viiruse genoomi 30 ots kodeerib SARS-CoV-2 ümbrist (E), membraani (M), spike (S) ja nukleokapsiidi (N) struktuurvalke [87]. S-valk soodustab SARS-CoV-2 seondumist ACE2-ga peremeesrakul, hõlbustades viiruse sisenemist ja patogeneesi. Peamiseks virulentsusteguriks peetav E-valk mängib rolli põletikuliste tegurite sekretsioonis. N-valk vastutab mRNA transkriptsiooni ja RNA replikatsiooni eest ning toodab nukleokapsiidi. M-valk mängib viiruse koostamisel olulist rolli. Oma tohutu genoomi tõttu on viirus replikatsiooni ajal peremeesorganismist vähem sõltuv ja suudab paljuneda peremeesgenoomist sõltumatult. Lisaks võimaldab RNA-sõltuv RNA polümeraasi (RdRp) geen viirusel reprodutseerida oma genoomi peremeesorganismi tsütoplasmas. SARS-CoV-2 siseneb rakku endotsütoosi teel pärast retseptoriga kinnitumist, vabastab viiruse RNA tsütosooli ja kasutab ära raku replikatsioonimehhanisme. Viimases faasis ühendavad endoplasmaatiline retikulum ja Golgi keha viirusvalgud ja RNA genoom virioonideks, mis seejärel eksosoomide kaudu rakust välja saadetakse [69,87]
3.6.1. AKE-retseptori ekspressiooni roll COVID{3}}-nakkuse ja vaktsineerimise ajal
Ligikaudu 80 protsenti kõigist inimese ACE2-ekspresseerivatest rakkudest on II tüüpi alveolaarrakud, ülejäänud osa jaotub nina limaskesta, ülemiste hingamisteede, endoteeli, südame-, neeru- ja soolerakkude vahel [13,14,88– 90]. Et olla edukas mitterespiratoorsete süsteemsete viirusnakkuste vastu, peab vaktsiin kaitsma retsipienti viiruse süsteemse leviku eest, indutseerides IgG tootmist. SARS-CoV-2 siseneva retseptori ACE2 ekspressioon suureneb lapsepõlvest täiskasvanueani ja seejärel väheneb koos vanusega [91]. See esineb enamikus kudedes; selle ekspressioon on aga kõrgeim 2. tüüpi pneumotsüütides [92]. Sellel on kaitsefunktsioon ning täpne seos ACE2 ja haiguse COVID{13}} raskusastme vahel pole teada. Täiskasvanutel, kellel on kaasuvaid haigusi, nagu hüpertensioon ja diabeet, on ACE2 aktiivsus vähenenud [92]. Loomkatsed on näidanud, et ACE2 kaitseb SARS-CoV põhjustatud kopsukahjustuste eest-2 [91]. Afiinsus ACE2 suhtes võib mõjutada haiguse tõsidust. On oletatud, et lastel on ACE2-l vähenenud afiinsus SARS-CoV-2 suhtes, mis takistab seega viiruse sisenemist peremeesrakkudesse [91].
3.6.2. COVID-19 vaktsiinidele vastuseks toodetud antikehade klassid
Individuaalsete immuunvastuste varieeruvus COVID{0}}-nakkusele näitab, et ühe immunoloogilise strateegia kasutamine vaktsiini koostamisel ei ole kõigi inimeste pikaajalise kaitse saavutamiseks piisav [93,94]. Vaktsiinid peavad kiiresti ja usaldusväärselt reprodutseerima spetsiifilisi immuunvastuseid, mis kutsuvad esile viiruse kliirensi.
Alumised hingamisteed on enamasti kaitstud IgG-ga, ülemisi hingamisteid aga peamiselt sekretoorne IgA. Loomulik hingamisteede viirustega nakatumine põhjustab nii süsteemset immuunvastust kui ka limaskesta immunoloogilist vastust, mida vahendavad vastavalt IgG ja IgA [95,96]. Intramuskulaarselt või intradermaalselt manustatud vaktsineerimine kutsub esile IgG taseme tõusu veres, kuid mitte limaskesta IgA tõusu. Intranasaalselt manustatud vaktsineerimine võib tõhusalt esile kutsuda limaskesta antikehade vastuseid, andes seega ülemistele hingamisteedele steriliseeriva immuunsuse. Süsteemne immuunvastus seda tüüpi vaktsineerimisele on aga sageli nõrk. Praegu manustatakse enamik kliinilistes uuringutes SARS-CoV-2 vaktsiinikandidaate intramuskulaarselt ja need keskenduvad vastusele IgM-le, IgG-le või kogu immunoglobuliinile veres [95,96].
3.6.3. Viirusmutatsioonid ja lapseea immuniseerimine
Alates 2020. aasta detsembrist on maailma erinevates piirkondades esile kerkinud mitu uut COVID{0}} tüve [97–99]. Uued tüved on nakkavamad ja virulentsemad ning võivad põhjustada haigestumuse ja suremuse suurenemist. Praegu ei ole tõendeid selle kohta, et noored oleksid uutele variatsioonidele vastuvõtlikud. On tõsine mure, et muutused piigi glükoproteiinis võivad muuta vaktsiinist indutseeritud antikehad ebaefektiivseks või subneutraliseerivaks [100]. Arvatakse, et praegused COVID-19 vaktsiinid on endiselt efektiivsed variandi N501Y vastu, kuid nende tõhusus võib muude murettekitavate uute variantide vastu väheneda [99 100]. Pfizer/BioNTech COVID-19 vaktsiin vähendab SARS-CoV-2 omikronilise versiooniga nakatumise tõenäosust 5–11-aastastel lastel 31 protsenti ja 12-aastastel noorukitel 59 protsenti. –15 aastat [101]. Lisaks on teatatud, et vaktsiin kaitseb noorukeid delta-variandiga nakatumise eest 87 protsenti. Need variandid näitasid proliferatiivset mustrit enne, kui noortel oli juurdepääs vaktsiinidele [99–101].
Seevastu on näidatud, et üle 80-aastaste osalejate seerumid neutraliseerivad vähem B.1.1.7 (Alfa), B.1.351 (Beeta) ja P.1. probleemsed (gamma) variandid (VOC) kui metsiktüüpi viiruse vastu ja neil puudub pärast esialgset annust suurema tõenäosusega neutraliseerimine lenduvate orgaaniliste ühendite vastu [102]. Olenemata vanusest ilmneb lenduvate orgaaniliste ühendite neutraliseerimine pärast teist annust. Pärast esimest ravi on vanematel ravile reageerijatel (kelle verel on neutraliseeriv toime) SARS-CoV{10}} spike-spetsiifiliste mälu B-rakkude kontsentratsioon kõrgem kui mittereageerivatel inimestel. Interferooni ja interleukiini -2 tootmine SARS-CoV-2 spike-spetsiifiliste T-rakkude poolt on vanematel inimestel vähenenud ja mõlemat tsütokiini toodavad enamasti CD4 T-rakud. Järelikult on eakad kõrge riskiga populatsioon ja selles populatsioonis on vaja täiendavaid meetodeid vaktsineerimisvastuse parandamiseks [102, 103], eriti kui lenduvad orgaanilised ühendid on laialt levinud.

3.7. COVID{2}} vaktsiinide ohutus imikutele ja lastele
On tekitatud muret COVID{0}} vaktsiinide kasutamine lastel, arvestades, et laste immuunvastus on tugevam kui täiskasvanutel [101–104]. Laste ja noorukite vaktsineerimisest saadav otsene kasu tervisele on väiksem kui täiskasvanutel, sest esimeses rühmas on raskemaid haigusjuhte ja surmajuhtumeid olnud vähem kui teises rühmas. Siiski väärib märkimist müokardiidi tekke oht. Kuigi see on haruldane, võib see ilmneda pärast Pfizer/BioNTechi vaktsiinide (BNT162b2 või mRNA-1273) teist annust 12–17-aastastel noorukitel [105–108]. FDA mudel ennustab ka, et vaktsiinist saadav kasu kaalub üles sellega kaasnevad riskid 5–11-aastastel lastel [80,107].
3.7.1. Vanemate kõhklus oma laste vaktsineerimise suhtes
Laste COVID{0}} vastane immuniseerimine on avalikkuse mure ja vastuoluline teema ning riikides, kus on saadaval COVID{1}} vaktsiinid, kasutatakse erinevaid vaktsineerimisstrateegiaid. Võrreldes COVID-19 immuniseerimisega täiskasvanutel, on BNT162b2 mRNA vaktsiinil 5–15-aastastel lastel ja noorukitel parem efektiivsus [109]. Nendes vanusevahemikes on tehtud hiljutisi uuringuid mRNA vaktsiinide immunogeensuse ja ohutuse kohta. Uuringud on näidanud ka inaktiveeritud CoronaVac vaktsiini immunogeensust ja ohutust 3–11-aastastel lastel [110]. MRNA vaktsineerimist kasutanud primaatide uuringud näitasid tugevaid ja püsivaid antikehade ja T-rakkude vastuseid [111]. Paljude riikide reguleerivad asutused on mRNA ja inaktiveeritud COVID-19 vaktsiinid litsentsinud erakorraliseks kasutamiseks väikelastel ja vanematel noorukitel ning need on nende uuringute põhjal kasutusele võetud ka teistes riikides.
Otsus pakkuda välja ja manustada noorukitele ja noorematele lastele COVID{0}} vaktsiine põhineb tavaliselt kasu-riski hinnangul [112–115]. Laste vaktsineerimise vajalikkuse kaalumisel on oluline meeles pidada, et enamik lapsi jääb sümptomiteta, 6 protsenti hospitaliseeritakse, 13 protsenti hospitaliseeritutest vastab raske haiguse kriteeriumile, mille suremus on 1 protsenti, ja teised. kannatavad pikaajaliste sümptomite all (pikk COVID) ja võivad vaktsineerimisest kasu saada [116]. Üldiselt on kasu suurem haavatavatele lastele, kellel on oht haigestuda raskesse COVID-i-19, ja kogu kogukonna kaitsele.
Kuigi lapsed ei ole SARS-CoV-2 ülekandumise kõrge riskiga populatsioon, vähendaks vaktsineerimine nende kontaktisikute nakatumise ja haigestumise riski. Kui need kontaktisikud on vastuvõtlikud ja reageerivad immunosupressiooni tõttu halvasti immuniseerimisele, oleks see üsna kasulik. On tehtud ettepanek, et lapsed peaksid saama COVID-19 vaktsiini, et saavutada kõrge vaktsineerimisega hõlmatus ja karja immuunsus [117–119]. Arvestades aga, et parenteraalne kõhklus laste vaktsineerimise suhtes on paljudes riikides endiselt suur, on karja immuunsuse saavutamise võimalus, eriti murettekitavate tüvede puhul, muutumas üha kaugemaks ning laste vaktsineerimise kohustus on viimastel aastatel nõrgenenud. .
Noorte COVID{0}} immuniseerimise eeliseks on see, et see võimaldab leevendada kontrollimehhanisme, mis suurendab kartmatut sotsiaalset suhtlust. [113]. Seetõttu võib COVID-19 immuniseerimise eeliseid tervetele noortele ära tunda, kuigi need on vähem ilmsed kui täiskasvanute puhul. Kuigi kliinilised uuringud on näidanud mRNA ja inaktiveeritud COVID-19 vaktsiinide ohutust, on vaja rohkem ohutusandmeid. Arvestades seda, et nii täiskasvanute kui ka laste seas on üha enam tunnustatud vaktsineerimise kasulikkust ja ohutust, propageeritakse lähitulevikus laste immuniseerimist COVID-i vastu{4}} tõenäoliselt rohkem.
3.7.2. Vaktsineerimise kahjulike mõjude mehhanismid täiskasvanutel ja lastel
Täiskasvanutel esineda võiva vaktsineerimise kahjulike mõjude küsimuse selgitamiseks võib arutada mitmeid mehhanisme. Kuigi need võimalused on haruldased ja piiratud, väärivad mainimist ning neid kaalutakse ka praegustes ja tulevastes hindamistes. Need toimed on erineva ulatusega ja võivad ilmneda esimesest vaktsineerimispäevast nädalate või isegi kuude möödumiseni. Neid kõrvaltoimeid, mis on peamiselt tingitud immunoloogilistest reaktsioonidest, on täheldatud nii täiskasvanutel kui ka lastel [120].
Täiskasvanutel hõlmavad need süsteemset põletikureaktsiooni sündroomi (SIRS), mis on proportsionaalne tsütokiinide tormiga; lai interaktsioon S-viiruse valkude ja laialdaselt ekspresseeritud ACE2 retseptorite vahel; interaktsioon S-viiruse valkude ja trombotsüütide ja/või endoteelirakkude vahel, mis põhjustab hüübimist, verejooksu ja neuroloogilisi mõjusid; nuumrakkude aktivatsiooni sündroom (MCAS); ja generaliseerunud lümfadenopaatia. Vastupidi, kõige olulisemad kõrvaltoimete mehhanismid lastel liigitatakse tavaliselt hüperpõletikuliseks, hüperkoagulatsiooniks, allergiliseks ja neuroloogiliseks. Need mõjud näitavad seost verehaiguste, neurodegeneratiivsete haiguste ja autoimmuunhaigustega [120].
Nende mõjudega täiskasvanutel ja lastel seostatavad mehhanismid on tingitud järgmistest koostoimetest. Vaktsineerimisel kasutatav S-valk võib olla organismile toksiline ja patogeenne, kahjustada veresoonte endoteeli, pärssida AKE retseptori ekspressiooni ja tõsta angiotensiin II taset [121]. See suurendab koroonaviiruse poolt indutseeritud vaskulaarsete rakkude düsfunktsiooni [122], kutsub esile funktsionaalseid muutusi südame-veresoonkonna peritsüütides, stimuleerib ERK1/2 fosforüülimist/aktivatsiooni läbi CD147 retseptori, seondub neuraalsete fosfolipiididega ja põhjustab nende mehaanilist destabiliseerumist ja permeabiliseerumist ning läbib vere-brainiini. barjäär hiirtel [123]. Tuginedes avastusele, et SARS-CoV-2-vastased valgu antikehad reageerivad 28-ga 55-st erinevast inimkoe antigeenist, on oletatud, et SARS-CoV-2 spike-valgud võivad samuti esile kutsuda põletikueelset. reaktsioon aju endoteelirakkudes ja autoimmuunsuse halvenemine inimestel, kellel on juba autoimmuunhaigused [124].
Lisaks on nii intradermaalse kui ka intranasaalse immuniseerimise korral inokulandi mRNA-d ümbritsev lipiidide nanoosakeste (LNP) kiht väga põletikuline [125]. Arvatakse, et vaktsiini koostisosa polüetüleenglükool (PEG) on Pfizer/BioNTechi mRNA COVID{1}} vaktsiini anafülaktiliste reaktsioonide tegur [126]. PEG-i sisaldavate tavaliste esemetega kokkupuute tõttu on inimesed vastuvõtlikud PEG-vastaste antikehade tekkele, mis võib pärast järgnevat vaktsineerimist põhjustada allergiliste reaktsioonide sagenemist [127]. Lisaks on inokulatsioonijärgse alaägeda türeoidiidi ja inokulatsioonijärgse kilpnäärme hüperaktiivsuse uuringud näidanud, et LNP kesta komponendid võivad põhjustada adjuvantide (ASIA) sündroomi põhjustatud autoimmuunse/põletikulise sündroomi, nagu näitavad uuringud inokulatsioonijärgse kilpnäärme hüperaktiivsuse kohta [128]. ] ja inokulatsioonijärgne alaäge türeoidiit [129]. On näidatud, et ChaAdOx1 (AstraZeneca rekombinantse adenoviiruse vaktsiini kandidaat SARS-CoV vastu-2) stimuleerib ajurakke tootma COVID-19 spike-valke, mis võivad vallandada immuunvastuse ajurakkude või spike-valgu poolt indutseeritud vastu. tromboos. See võib aidata selgitada viirusvektoritel põhinevate COVID{16}} vaktsiinidega seotud surmaga lõppeva ajuveenide siinuse tromboosi (CVST) kummalisi juhtumeid [130,131].
Kokkuvõtteks võib öelda, et kõik ülalnimetatud mehhanismid on tuletatud teadusuuringutest ja kogutud kliinilised andmed ei muuda SARS-CoV-vastaste vaktsiinide ülemaailmset kasutamist olematuks, kuna need on haruldased ja tekitavad vähe muret. Vaktsineerimise eelised on valdavalt suuremad kui piiratud ulatusega kõrvalmõjud.
4. Immuunvastus SARS-CoV-2 infektsioonile
4.1. COVID-19-Immuunsus tekitas vastsündinutel ja noorukitel
Enamikul COVID-i{0}} põdevatel lastel on sümptomid minimaalsed või isegi puuduvad, kuid mõnel võib esineda raskeid või pikaajalisi sümptomeid (pikk COVID), sel juhul võib vaktsineerimisest abi olla [116]. Oluline on märkida, et 10–14-aastased lapsed on SARS-CoV{5}} nakkusele vähem vastuvõtlikud kui täiskasvanud [3,5,101–104]. Noorukieas kõrge vaktsineerimisega hõlmatuse saavutamiseks ja karja immuunsuse suurendamiseks soovitati hiljuti laste COVID{10}} vaktsineerimist alates viie kuu vanusest [82,83,117–119].
Esialgne kaitseliin laste SARS-CoV-2 esmase nakkuse vastu on kaasasündinud immuunsus [132]. Kuigi kerge haiguse korral esinevad vastupidised reaktsioonid, väheneb interferooni (IFN) vastus rasketel juhtudel, millel on kõrge põletikuline reaktsioon [133]. Lastel, kellel on nii raske kui ka kerge laste COVID-19 haigus, on kõrge põletikuliste tsütokiinide tase [134–137]. See järeldus võib olla seotud laste varem omandatud treenitud kaasasündinud immuunsuse potentsiaalse panusega [138, 139]. Sarnaseid tunnuseid, mis hõlmavad erinevate rakkude, näiteks monotsüütide ja dendriitrakkude (DC-de) aktiveerimist, samuti lümfotsüütide, monotsüütide, DC-de ja NK-rakkude kontsentratsiooni lühiajalist langust on täheldatud pärast COVID-i algust{{9} } sümptomid nii lastel kui ka täiskasvanutel [138 140]. Võrreldes täiskasvanute COVID-19-ga on neutrofiilide aktivatsioon lastel COVID{13}}-juhtudel madalam, mis võib vähendada koekahjustusi ja põletikku [141]. Tervete noorte ringlevate lümfotsüütide kõrge protsent võib vastupidi võimaldada neil haigusi paremini reguleerida [142]. Kaasasündinud immuunsüsteem mängib olulist rolli SARS-CoV-2 replikatsiooni varases reguleerimises esmase infektsiooni ajal [132].
Raske haiguse korral on iseloomulik vähenenud esialgne interferooni (IFN) reaktsioon, millele järgneb kontrollimatu ja püsiv põletik [133]. Võtmeküsimus on selles, kas lastel on tugevam kaasasündinud immuunvastus, mis võib tõhusamalt viiruse replikatsiooni pärssida, või tekib neil vähem intensiivne põletikuline reaktsioon, mille tulemuseks on vähem ja leebemad sümptomid. Üldiselt on tsütokiinide tase lastel madalam [134] ja ägeda respiratoorse distressi sündroomiga lastel on põletikulisi tsütokiine madalam kui täiskasvanutel (tabel 3) [143].

Varem väideti, et COVID-i{0}} põdevatel lastel on kliinilised põletikunäitajad kas märkamatud või tagasihoidlikud [144–147]. Hilisemates haiglaravil viibivate laste ja täiskasvanutega tehtud uuringutes leiti aga võrreldav või kõrgem süsteemne tsütokiinide tase [148]. Lisaks on nii kerge haigusega lastel [138] kui ka lastel, kellel on raske COVID-19 [135–137] juhtum, ilmnenud põletikuliste tsütokiinide oluline tase. Lisaks on näidatud, et lastel, erinevalt täiskasvanutest, on tugevam nasaalne kaasasündinud immuunvastus, sealhulgas kõrgem IFN- ja IFN-tase. Selle uuringu kohaselt võib lastel esineda tugevam varajases staadiumis viirusevastane reaktsioon limaskesta tasemel [148]. Laste kaitset COVID-iga seotud haiguste vastu võib aidata tugev ja tõhus IFN-vastus [149]. Seda olukorda võib mõjutada ka treenitud kaasasündinud immuunsuse võimalik funktsioon SARS-CoV-2 nakkuse ennetamisel lastel, kes on saanud eelneva immuniseerimise või sagedaste infektsioonide tõttu [139].
Perifeerse vere immuunrakkude analüüsid sümptomite varajases staadiumis lastel ja täiskasvanutel on näidanud sarnaseid omadusi, sealhulgas monotsüütide ja dendriitrakkude (DC) aktiveerumist ning hetkeliselt väiksemat lümfotsüütide, monotsüütide, DC-de ja NK-rakkude arvu [138, 140]. Neutrofiilid näivad olevat noorte COVID{2}} juhtude korral vähem aktiivsed kui täiskasvanutel, mis võib vähendada koekahjustusi ja põletikku [48]. Lisaks on lastel rohkem tsirkuleerivaid lümfotsüüte kui täiskasvanutel, mis võib aidata haigusi juhtida [142]. Lastel võivad need rakud nakatumiskohta värvuda varem ja suuremal hulgal kui täiskasvanutel. (Tabel 4).
Nüüdseks on hästi teada, et lapsed võivad SARS-CoV-le -2 tekitada tugeva neutraliseerivate antikehade vastuse [150–153]. Väikeste pediaatriliste kohortide uuringute esialgsed aruanded on näidanud madalamat seerumit neutraliseerivat aktiivsust võrreldes täiskasvanutega [148, 154], samuti vähenenud antikehareaktsiooni piigivalgule [154]. Lisaks on täheldatud, et olenemata haiguse tõsidusest on lastel SARS-CoV-2 antikehade tase madalam, kusjuures oluliselt suurem protsent neid antikehi on suunatud mittestruktuursetele viirusvalkudele [155]. Kerge COVID-iga lastel ja täiskasvanutel{10}} on edasised uuringud avastanud võrreldava funktsionaalse antikeha profiili, sealhulgas fagotsüütide ja komplementi aktiveeriva IgG [151,156]. Lisaks ilmneb lastel võrreldes täiskasvanutega kiirem antikehavastuse algus retseptorit siduvale domeenile (RBD) ja perifeerse vere B-rakkude transkriptoomilise signatuuri kiirem tekkimine. Laste kiiremad B-rakkude vastused SARS-CoV-le{16}} võivad aidata neil viirust paremini ohjeldada ja sümptomeid vähendada. Laste neutraliseerivate antikehade ja antikehi sekreteerivate B-rakkude tasemetel on seitse päeva pärast sümptomite ilmnemist pöördvõrdeline seos viiruskoormusega (joonis 3) [157].
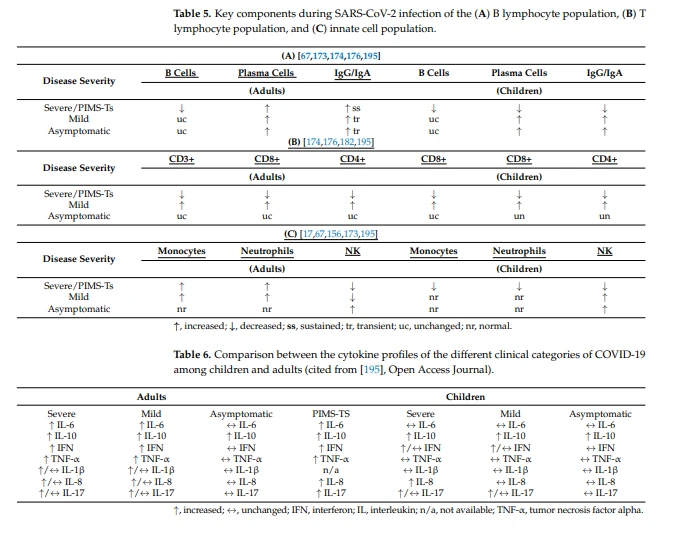
Lisaks on pikemad antikehareaktsioonid ja somaatiliste mutatsioonide tase mälu B-rakkudes seotud kiirema taastumisega sümptomaatilisest COVID{0}}-st täiskasvanutel [158]. Lastel on anti-SARS-CoV-2 IgG tase kuus kuud pärast nakatumist madalam kui nende samal ajal nakatunud vanematel [159]. Mõõduka või asümptomaatilise infektsiooni järgselt on mitmed lastel ja noorukitel tehtud uuringud näidanud tugevat ja pikaajalist antikehavastust SARS-CoV-le-2 [160]. Rakkude vahendatud immuunsuse osas on vaid vähesed paberid kirjeldanud SARS-CoV-2-spetsiifiliste T-rakkude vähenenud või võrreldavat taset lastel (tabel 5) [36,63,71,148,161].
Kokkuvõtteks võib öelda, et COVID{0}}-nakkuse aste ja tõsidus indiviidil võib sõltuda I tüüpi viirusevastase IFN-i vastuse kujunemisest varakult pärast nakatumist. Samuti on avastatud raske COVID-19 infektsiooniga inimestel, et IFN-I vastaste autoantikehade arv suureneb proportsionaalselt vanusega. Seetõttu on soovitatav, et SARS-CoV-2-ga kokku puutunud APS-1-ga lapsi tuleks ravida neutraliseerivate IFN-I-vastaste autoantikehade eemaldamisega plasmavahetuse teel. Tõsised COVID{8}} probleemid tulenevad varajastest IFN-I ja/või IFN-III reaktsioonidest, mis ei suuda SARS-CoV-2 replikatsiooni piirata. Raske COVID{13}}-kopsupõletiku esinemine lastel ja noortel on põhjustatud I tüüpi IFN-i geeni geneetilistest muutustest. Lisaks näitavad erinevused laste ja täiskasvanute kudede immuunrakkude koostise ja algtaseme viirusevastase geeniekspressiooni vahel epiteelirakkudes, et laste viirusevastased vastused on palju tugevamad.
4.2. Kliiniline teave COVID-i kohta{2}} lastel
Varasemate uuringute kohaselt on täiskasvanutel, eriti eakatel, suurem tõenäosus haigestuda SARS-CoV-sse-2. Igaüks, isegi imik, võib selle haigusega nakatuda [162 163]. Aruannete kohaselt on COVID{4}}-ga lapsed keskmiselt 6,7-aastased (vahemik: 1 päev kuni 15 aastat) [164]. SARS-CoV{11}} infektsioon on 10–14-aastastel lastel harvem [12]. Näib, et lapsed kogevad COVID{15}} sümptomeid peenemalt kui täiskasvanud. Kuigi 69 protsendil nakatunud täiskasvanutest on kliinilised näidustused, on ilmsed sümptomid vaid ligikaudu 21 protsendil imikutest [165].
Kõige sagedasemad ülemiste hingamisteede infektsiooni tunnused lastel on palavik ja köha. Palavik võib ulatuda madalast kuni raskeni. Hingamisvaevused, kurguvalu, vesine või ummistunud nina, nõrkus, müalgia ja peavalu on muud kliinilised nähud ja sümptomid. Lisaks on teatatud seedetrakti probleemidest, nagu kõhulahtisus, oksendamine ja iiveldus [166–168]. Väiksema viiruskoormuse tõttu on lapsed ka vähem nakkavad; Siiski, kui nad saavad 15-aastaseks, läheneb nende nakkavus täiskasvanute omale.
Lapsed on COVID-ile vähem vastuvõtlikud{0}} hingamisteede viirusinfektsioonidesse haigestumise sageduse ja võimaliku hiljutise kokkupuute tõttu mõne muu suurema koroonaviiruse tüvega. Angiotensiini konverteeriva ensüümi (ACE2) kaitse lastel, kellel on kõrge COVID-i-19 tase, võib põhjustada kergemaid haigusi [91,92]. Süsteemse põletiku püsimise tõttu võib raske COVID{6}} ilmneda lastel, kellel on kroonilised haigusseisundid, nagu immuunpuudulikkus, hematoloogilised või onkoloogilised pahaloomulised kasvajad ja astma [77,169].
Raske COVID{0}} tunnuseks on immuunsüsteemi ülitundlikkus. Esialgse immuunvastuse ajal viirusinfektsioonidele tekib I tüüpi interferoon (IFN). IFN soodustab rakusisese RNA lagunemist ja viiruse eliminatsiooni, soodustab kudede paranemist ja algatab pikaajalise adaptiivse immuunvastuse. Eeldatakse, et I tüüpi IFN-i vabanemise viivitus on viiruskontrolli halvenemise ja raskete COVID{2}} juhtude hüperpõletiku episoodi algpõhjus [170–172]. Lisaks on näha, et raskete haigustega inimesed toodavad tsütokiine korrapäratult ja kontrollimatult, mis süvendab nende sümptomeid ja seisundit. Tsütokiinitormist põhjustatud põletik, mis kahjustab kopsuveresoonte ja alveolaarbarjääri, põhjustab alveolaarsete interstitsiumi paksenemist, veresoonte leket, kopsufibroosi ja surma [170–172].
4.3. Raske COVID{2}} immunopatoloogia lastel ja täiskasvanutel
4.3.1. Kaasasündinud immuunsuse funktsioon
Täiskasvanutel, kellel on raske COVID{0}}, on kaasasündinud immuunsüsteem hüperaktiivne, kuid ebaefektiivne ja adaptiivne immuunsüsteem on allasurutud [173]. See võib põhjustada paljude elundite rikke, tõsist immuunvahendatud kopsukahjustust ja põletikueelsete tsütokiinide kontrollimatut tootmist (joonised 1 ja 2) [173]. Täiskasvanute raskete COVID{6}} juhtude korral esineb tsirkuleerivate neutrofiilide ja monotsüütide kõrge kontsentratsioon. Põletikulisi tsütokiine vabastavad klassikalised (CD14 pluss CD16 plus) ja keskmised (CD14 pluss CD16 pluss) monotsüütided raskete COVID{11}} juhtude korral [173]. Need aktiveeritud kaasasündinud rakud on kerge haigusega või asümptomaatiliste patsientide puhul äärmiselt haruldased. Mitteklassikalised monotsüüdid (CD14-CD16 plus), millel on põletikuvastased omadused ja mis mängivad rolli endoteeli terviklikkuse säilitamisel, on raskete täiskasvanute COVID{16}} juhtude korral vähem levinud [173,174].
Neutrofiilide ekstratsellulaarsed püünised (NETS), mis on loodud aktiivsete neutrofiilide poolt, "lõksuvad" nakatunud rakke ja baktereid. Need VÕRGUD võivad ka toita hüübimiskaskaadi. Seega on COVID{0}} nakkuse korral täheldatud mikroangiopaatiat ja tromboosi seostatud NETSiga [174]. PIMS-TS-iga lapsed surevad läbi endoteelirakkude surma ja mikrotromboosi, eriti nahakahjustuste korral [175]. Laste põletikulise multisüsteemse sündroomi mikrovaskulaarne ja trombootiline etioloogia, mis on ajaliselt seotud SARS-CoV-2 ja raske täiskasvanud COVID-19-ga, võib olla võrreldav.
COVID-i-19 korral väheneb NK-rakkude kontsentratsioon pidevalt, kuid see on ilmsem raske haigusega inimestel [173]. Ühe uuringu kohaselt [176] oli intensiivraviosakondades (ICU) COVID-19 patsientidel vähem perforiini tootvaid NK-rakke kui mitte-intensiivravi osakondades. Raske haiguse korral ei ole NK-rakud mitte ainult vähem funktsionaalsed, vaid ka arvuliselt vähem. Siiski säilib NK-rakkude arv lastel COVID-i{6}} juhtude korral. Sarnast NK-rakkude ja mitteklassikaliste monotsüütide arvu vähenemist on leitud PIMS-TS-iga lastel [177].
Pärast tüüpilisi lapseea nakkusi ja/või vaktsineerimisi programmeeritakse kaasasündinud immuunrakud funktsionaalselt ümber, võimaldades adaptiivse immuunsüsteemiga sarnanevate mälurakkude arenemist ja see viib lastel treenitud immuunsuseni [178–180]. APC-sid, nagu DC-sid, pärsib SARS-CoV-2, mis takistab kaudselt T-rakkude aktiveerumist ja toimimist [174]. DC-d toodavad interferooni (IFN) I ja III, mis on võimsad viirusevastased tsütokiinid, mis on olulised viirusnakkuste algfaasis. IFN supressioon, peremeesorganismi kõige tõhusam viirusevastane kaitsemehhanism, võimaldab SARS-CoV-2 immuunsüsteemist mööda minna [177].
4.3.2. Adaptiivse immuunsuse roll
Mobiilsed komponendid
Lümfopeeniat ja kõrget neutrofiilide ja lümfotsüütide suhet täheldatakse täiskasvanute COVID-19 rasketel juhtudel, kuid lastel on see aeg-ajalt [181,182]. Täiskasvanutel on vähenenud CD4 pluss ja CD8 pluss naiivsete ja mäluga T-lümfotsüütide tase [183]. Kuigi need on laste COVID-19 puhul puutumatud, väheneb lümfotsüütide tase PIMS-TS-is [177 180].
Täiskasvanud COVID{0}} patsientidel on CD8 pluss T-lümfotsüütide ebanormaalselt palju [183]. Lisaks on keskmise haigusega patsientidel kõrgem SARS-CoV-2- spetsiifiline T-raku vastus võrreldes raske haigusega patsientidel. See näitab, kuidas puutumatu adaptiivne immuunsus on seotud parema haigustõrje ja taastumisega [174,183].
Raske COVID-ga inimeste T-rakkudel{0}} on kõrgem rakuväsimuse ekspressioonitase ja programmeeritud rakusurma inhibeerivad näitajad, nagu PD-1, LAG-3, T-raku immunoglobuliin ja mutsiini domeeni, mis sisaldab -3 (TIM3) [174 182]. T-rakkude kurnatus on seotud madalama efektori jõudlusega, mis tähendab, et humoraalne reaktsioon mõjutab nii rakulise immuunsuse funktsionaalseid kui ka kvantitatiivseid tahke [174, 183, 183].
Humoraalne vastus
Täiskasvanud COVID{0}} patsientidel tekivad neutraliseerivad antikehad piigiglükoproteiini (S) vastu, mis esinevad enamikul taastuvatel inimestel [174]. Nendel patsientidel on suurem plasmarakkude arv, kuid madalam üldine B-rakkude arv [173]. IgG ja IgA tase on lühiajaliselt tõusnud täiskasvanutel, kes on asümptomaatilised või kergelt haiged [173]. Raske COVID-iga inimestel-19 on püsivalt kõrge IgG ja IgA tase. IgG ja IgA tugevamad kontsentratsioonid, eriti neutrofiilides, mis ekspresseerivad pinna Fc retseptoreid, võivad samuti säilitada kaasasündinud rakuaktiivsust, mis võib olla korrelatsioonis tugevamate neutraliseerivate antikehadega [184, 185]. Asümptomaatilistel, kergetel ja rasketel patsientidel täheldati IgM taseme varajast tõusu [173]. Pediaatrilistel COVID{8}}-juhtudel on varases staadiumis IgM tõus, püsiv IgG tase ja IgA taseme langus [173,174].
Teisest küljest aktiveerivad IgG ja IgA SARS-CoV-2 immuunkompleksid humoraalse immuunsuse osana MBL-i ja klassikaliste radade kaudu ka komplemendisüsteemi. MAC-kompleksid (C5b-9) lüüsivad rakke pärast komplemendi aktiveerimist, soodustades fagotsütoosi ja NETS-i moodustumist [174].
Vastupidi, PIM-TS-iga lastel puudub IgM [184]. Täiendavad tõendid selle kohta, et PIMS-TS on kliiniline seisund, mis avaldub nädalaid pärast ägeda infektsiooni avastamist nendel lastel ja mille annavad SARS-CoV-2 PCR tulemused, mis olid negatiivsed [184]. PIMS-TS-iga lapsed on nende kõrge IgG taseme ja pikaajalise Fc retseptoriga seondumisvõime tõttu altid monotsüütide aktivatsioonile ja pikaajalisele hüperinflammatoorsele aktiivsusele [185].

4.3.3. Anamnestilised vastused SARS-CoV-le-2
Täiskasvanute raske COVID{0}} progresseerumine on üsna järkjärguline (st surmaga lõppenud juhtudel 19 päeva pärast sümptomite ilmnemist) [186 187], mis näitab, et mälu B- ja T-rakkude kaitsva rolli arendamiseks on vaja päevi [187 ]. Viirusspetsiifilise mälu CD4 pluss ja CD8 pluss T-raku vastused jäävad aktiivseks vähemalt kuus kuud, kuid viirusspetsiifilised antikehavastused langevad pärast kolmekuulist nakatumist [188]. Lisaks on näidatud, et B-mälurakkude vastused SARS-CoV-2-le tekivad 1,3–6,2 kuud pärast nakatumist, mis vastab viiruse antigeenide püsivusele enterotsüütides [189]. Immuunsus võib samuti soodustada inimeste ebatõhusat viiruse eemaldamist, kiirendades seega COVID-i kulgu-19.
Immuunvastused, mis moodustuvad kiiresti pärast infektsiooni lahenemist, ei ennusta täiskasvanu pikaajalist mälu [189]. Selle põhjuseks on asjaolu, et 28–50 protsendil inimestest, kes ei ole varem SARS-CoV-2 nakkusega kokku puutunud, on ristreaktiivsed T-rakud, mis tekkisid tõenäoliselt vastusena teistele koroonaviiruste perekonna liikmetele, näiteks nohu koroonaviirustele HCoV. -OC43, HCoV-HKU1 ja HCoV{11}}E [190]. Lastel võivad tekkida ristkaitsvad antikehad SARS-CoV-2 vastu tüüpiliselt hooajaliste koroonaviirustega (joonis 4) [174,178–180].

4.3.4. Tsütokiinide torm
Täiskasvanutel, kellel on raske ja eluohtlik COVID-19, algab hüperpõletikuline reaktsioon (st tsütokiinitorm) nakatumise teisel nädalal. Tsirkuleerivate põletikueelsete tsütokiinide kõrgenenud taseme tõttu võivad patsiendid kannatada ägeda respiratoorse distressi sündroomi (ARDS), mitme elundipuudulikkuse ja dissemineeritud intravaskulaarse koagulatsiooni (DIC) all [191,192]. ARDS-i korral käivitab makrofaagide ja neutrofiilide kopsuinfiltratsioon tsütokiinide tormi [191, 192]. Need kaasasündinud immuunsusrakud genereerivad tugevaid põletikulisi tsütokiine, nagu IL-6, IL-12, IL-10 ja TNF-. Teised uuringud on näidanud IL-1, IL-7, IL-8, IL-17 ja granulotsüütide kolooniaid stimuleeriva faktori (G-CSF) kõrgenenud taset [193,194]. IL-6, IL-10 ja C-reaktiivse valgu (CRP) kõrgenenud taset peetakse prognostilisteks näitajateks [193,194]. Lisaks korreleeruvad lümfopeenia, kõrgenenud ferritiini ja D-dimeeri tase haiguse raskusastmega COVID-ga nakatunud täiskasvanutel-19 [192].
SARS-CoV-2-ga nakatunud laste ja täiskasvanute toodetud tsütokiinide profiilid on erinevad [177,184,190,194]. Enamik neist on raske / PIMS-TS korral praktiliselt muutumatud ja lastel esineb mõõdukaid juhtumeid võrreldes nende kõrgenenud tasemega täiskasvanutel, hoolimata nende järjepidevusest asümptomaatilistel juhtudel (tabel 6).
4.3.5. PIMS-TS raske pediaatrilise COVID-i korral-19
2020. aasta aprillis tuvastati lastel Kawasaki haigust, keskmise suurusega arterite, näiteks pärgarterite infektsioonijärgset põletikku meenutavad juhtumid [196–199]. Võrreldes varasemate aastatega on nende juhtumite esinemissagedus järsult kasvanud. Immunoloogilised uuringud näitasid hüperpõletikulist seisundit, mis erineb nii Kawasaki haigusest kui ka tsütokiinitormist, mida täheldati raske ägeda COVID-19 [200,201] korral. Seda haigusseisundit nimetatakse praegu laste multisüsteemseks põletikuliseks sündroomiks, MIS-C (ja täiskasvanutel MIS-A-ks USA haiguste tõrje keskuste (CDC) ja WHO poolt või laste põletikuliseks multisüsteemseks sündroomiks, mis on ajutiselt seotud SARS-CoV-ga. {10}} (PIMS-TS) Ühendkuningriigi kuningliku pediaatria ja laste tervise kolledži (RCPCH) poolt). See on aeg-ajalt esinev seisund, mis areneb lastel ja noortel täiskasvanutel 1–2 kuud pärast SARS-CoV{15}} infektsiooni ja on sageli asümptomaatiline või vähesümptomaatiline. See haigus meenutab toksilise šoki sündroomi ja seda ravitakse kortikosteroidide ja immunoglobuliinidega [202]. Teatud juhtudel kasutatakse immunomodulaatoreid, nagu IL-1RA ja anti-TNF. Seda sündroomi iseloomustavad autoantikehad, mis on suunatud erinevatele koeantigeenidele [200, 203, 204] proteaanselt [205].
Laialt levinud immunoloogilise aktivatsiooni ja düsregulatsiooni selgitamiseks on näidatud, et SARS-CoV-2 spike-valgu superantigeenipiirkond võib siduda, ristsidestada ja aktiveerida T-rakke spetsiifiliste T-raku retseptoritega (TCR-idega), mille tulemuseks on ahelate moodustumisel [202,206–209]. MIS-C esilekutsumiseks võib lisaks SARS-CoV{8}} infektsioonile olla vaja ka muid superantigeeni komponente kandvaid patogeene. Need patogeenid on tõenäoliselt piiratud laste ja noorukitega. See teooria võib selgitada, miks MIS-C on eakate seas haruldane. Teise võimalusena erineb SARS-CoV{11}} poolt esile kutsutud esialgne immuunvastus lastel ja täiskasvanutel (vt ülal, 1. jagu), luues seega vajalikud tingimused hilisemaks superantigeeni poolt vahendatud MIS-C-ks just nendel isikutel, et tugevdada immuunsüsteemi. vastuseks. Seda tugevdab veelgi asjaolu, et MIS-C avaldub hiljem kui teised superantigeeni poolt vahendatud haigused.
Lisaks võib MIS-C arendamiseks vajada geneetilist komponenti [210], sealhulgas HLA I klassi geenide olemasolu [209]. Soolestik, mitte hingamisteede limaskest, on MIS-C superantigeenide allikas [211], mis annab veel ühe seletuse MIS-C hilinenud arengule. Võimalikud seletused hõlmavad viiruse pikaajalist levikut laste soolestikus, mis võib olla suurem kui täiskasvanutel, ja soolebarjääri terviklikkuse häireid MIS-C patsientidel [211]. Seda kinnitab tõsiasi, et enamikul MIS-C-ga lastel on soole sümptomid ja terminaalne niudesoole põletik [212]. Geneetiliselt vastuvõtlikel inimestel võib SARS-CoV{12}} viirus põhjustada lokaalset superantigeeni poolt vahendatud T-rakkude aktivatsiooni ja põletikku, soolebarjääri terviklikkuse kaotust ja superantigeenide vabanemist vereringesse lastel rohkem kui täiskasvanutel. Need muutujad võivad põhjustada süsteemseid hüperpõletikulisi reaktsioone, mida täheldati MIS-C-ga lastel ja noorukitel. PIMS-TS mõjutab kahte kolmandikku raske COVID{16}} haigusega lastest [212]. Viimast sündroomi iseloomustab lai kliiniliste sümptomite spekter ja haiguse erinev raskusaste, sealhulgas šokk, mitme organi puudulikkus, vasaku vatsakese düsfunktsioon ja koronaararterite anomaaliad [213]. Mõnikord nimetatakse PIMS-TS-i aluseks olevat tsütokiinitormi makrofaagide aktiveerimise sündroomiks (MAS) [184,213].
Lisaks selgus, et PIMS-TS-iga lastel on IL-6, IFN-, TNF- ja CXCL10 (kemokiini "CXC motiiv" ligand) tase kõrgem kui ägeda COVID-iga lastel-19 [186 ]. COVID-19 infektsiooniga täiskasvanutel on rohkesti kemokiine CXCL10 (tuntud ka kui gamma-interferooni indutseeritud valk 10), CXCL8 ja CCL2 (CC kemokiini ligand, tuntud ka kui monotsüütide kemoatraktantne valk-1) [ 194]. Teised uuringud on aga näidanud, et IL-6, IFN- ja TNF tasemed lastel COVID{19}} olid stabiilsed ja muutumatud [181]. Sarnaselt raskekujulise COVID-iga täiskasvanud patsientidele-19 ilmnesid PIMS-TS-iga patsientidel kõrged CRP, ferritiini ja D-dimeeri väärtused, mis viitab põhihaiguse põletikulisele olemusele [214]. Need leiud näitavad, et raske COVID-19 ja PIMS-TS-iga inimeste immuunvastused ja biomarkerite tasemed on oluliselt võrreldavad. Nendest häiretest põhjustatud elundikahjustused on üsna ainulaadsed. PIMS-TS ei näi olevat SARS-CoV-2 nakkuse otsene tagajärg, vaid pigem SARS-CoV-2 poolt peremeesorganismis tekitatud immunoloogiliste muutuste tagajärg [215]. PIMS-TS-i patsiendid saabusid nädalaid pärast COVID-19 esimese laine haripunkti ning enamik haigeid lastest olid SARS-CoV-2 PCR-negatiivsed ja IgG-positiivsed [213 214]. Seevastu täiskasvanud COVID{41}} patsiendid võivad haiguse edenedes jääda PCR-positiivseks.
4.4. Energia jaotamise perspektiiv lastel COVID{2}} kohta
Füüsiline areng on oluline füsioloogiline erinevus laste ja täiskasvanute vahel. Inimesed sünnivad vähearenenud ja abituna; seetõttu on tugev evolutsiooniline vajadus soodustada varajast kasvu [216]. Järelikult tasakaalustab energia jaotamine vajadust immuunvastuse ja arengu vahel, eelistades viimast, kuni patogeen kujutab tõsist ohtu lapse elule ja vormisolekule [216]. Haigustaluvus on immuunkaitsemehhanism, mida kasutatakse juhul, kui immuunvastus patogeenile on kahjulikum kui infektsioon ise [216]. Tõenäoliselt on areneva nooruki otsus teatud viirusega võidelda või seda taluda teistsugune kui täiskasvanul. Oletatakse, et noorukitel on suurem kalduvus taluda haigust, et minimeerida süsteemset põletikulist vastust, kui see on võimalik. 0–20-aastaste laste energiavajadus on pidevas languses, kusjuures poisid vajavad mõnevõrra rohkem energiat kui tüdrukud. Kõigist immuunsüsteemi protsessidest on süsteemne põletikuline reaktsioon kõige kallim ja põhjustab sageli lastel kehakaalu langust viirusepisoodide ajal, mida iseloomustavad palavik, lihasvalu ja muud süsteemse põletiku sümptomid. SARS-CoV-2 nakkuse ajal on asümptomaatilise COVID-19 esinemissagedus kõige suurem kõige suurema energiavajadusega lastel [217].
Mõõdukas ja asümptomaatiline COVID{0}} infektsioon lastel on seotud serokonversiooniga, neutraliseerivate antikehade ja spetsiifiliste T-rakkude tekkega, kuid mitte süsteemse põletiku või kõrvalseisja T-rakkude aktivatsiooniga. Arvestades, et T-rakkude poolt vahendatud vastused on viiruse kliirensi jaoks üliolulised, on õiglane eeldada, et madalam kõrvalseisja T-rakkude aktivatsioon ja kergem süsteemne põletikuline reaktsioon võivad suurendada viiruse püsivuse võimalust. Hiljutine aruanne näitas, et SARS-CoV-2-ga nakatunud asümptomaatilistel lastel on sarnased adaptiivsed T- ja/või B-rakkude vastused, kuid madalamad tsütokiinivastused [218].
Kui lapsed ja noorukid valivad kasvu jaoks energia eraldamise tõttu tõenäolisemalt haigustaluvust haigusresistentsuse asemel, võib see selgitada, miks MIS-C on lastel ja noorukitel kõige levinum. Lapsepõlves on poistel veidi suurem energiavajadus kui tüdrukutel, mis vastavalt siin kirjeldatud energiajaotuse hüpoteesile peaks tähendama suuremat eelsoodumust haigustaluvuseks ja poiste sagedasemateks kergeteks või asümptomaatiliseteks haigusteks [202,210].
5. Kokkuvõtvad immunoloogilised märkused
SARS-CoV-2 nakkus lastel ja eakatel avaldub erinevalt, olenevalt enamasti immunoloogilisest vastusest. Laste ja noorukite immuunsüsteemi eripärade mõistmine võib aidata välja töötada tõhusaid ja tõhusaid vahendeid haiguste tõrjeks, ennetamiseks ja raviks. Samuti võib olla võimalik paremini mõista teisi immuunsüsteemiga seotud haigusi, vaatamata nende erinevatele sümptomitele vanusevahemikus. Kuna SARS-CoV-2 on uus zoonootiline patogeen, puudub eelnev immuunsus; seega on kogu inimpopulatsioon vastuvõtlik nakkustele ja COVID{4}} haiguse tekkele. Kõik lapsed on vastuvõtlikud SARS-CoV-2 infektsioonile, kuid enamik laste juhtudest on kerged; tõsine COVID{7}} haigus on lastel võrreldes täiskasvanutega aeg-ajalt [219]. Laste madal ACE2 retseptori ekspressioon võib kaasa aidata nende suhtelisele resistentsusele [13, 14, 88–92]. Laste kaasasündinud immuunsüsteem võib aga olla SARS-CoV{15}} resistentsuse ja haavatavuse mõistmise võti. Lisaks aitavad esimestel eluaastatel esinevad korduvad infektsioonid kaasa T- ja B-mälurakkude tekkele, mis pärsivad uuesti nakatumist või haiguse arengut sageli esinevate patogeenide poolt [220].
Enamikul COVID{0}} juhtudest saavutab viiruskoormus haripunkti nakatumise esimesel nädalal ja patsiendid tekitavad oma põhilise immuunvastuse 10. ja 14. päeva vahel, millele järgneb viiruse kliirens, mida vahendavad kõrge afiinsusega antikehad. ja T-rakud. Naiivsete B-rakkude reaktsioon igale värskele infektsioonile või vaktsiinile toimub idukeskuse reaktsiooni kaudu ja selleks kulub kaks nädalat [221]. Laste immuunsüsteem on valmis reageerima mis tahes haigusele, sealhulgas SARS-CoV-2 kolmele tegurile. Esiteks mängivad looduslikud antikehad infektsiooni varases staadiumis otsustavat rolli [222]. Need antikehad on valdavalt IgM isotüüpi, toodetud sõltumatult eelnevast antigeeniga kokkupuutest ning neil on lai valik reaktsioonivõimet ja muutuv afiinsus. Nad võivad piirata nakatumist kahe nädala jooksul, mis on vajalik kõrge afiinsusega antikehade ja mälu B-rakkude (MBC) tootmiseks, mis kõrvaldab viiruse ja hoiab ära uuesti nakatumise [223]. Vahetatud MBC-d toodavad kõrge afiinsusega antikehi [223].
Teiseks saavad noored kiiresti luua laia reaktiivsusega looduslikke antikehi, mida ei ole veel valitud ega modifitseeritud immuunvastusega levinud keskkonnainfektsioonidele. Seda saab saavutada CD27dim ja CD27bright MBC-de koostöös, et toota vastavalt antigeenispetsiifilisi või IgM (kaasasündinud) antikehi [224].
Kolmandaks, imikutel ja lastel on enamik MBC-sid CD27 tuhmid, muutes nad uute antigeenidega väga kohanemisvõimeliseks. Seevastu eakatel on suurem osa MBC-sid CD27 heledad ja ei suuda kohaneda uute antigeenidega. B-rakkude teine funktsioon on tsütokiinide sekretsioon. Vastsündinu B-rakud, aktiveeritud B-rakud ja IgA plasmablastid vabastavad võimsa põletikuvastase tsütokiini IL-10 [225]. Järelikult võib laste immunoloogilisel vastusel olla kaks eesmärki: pakkuda kaitset ja vähendada immuunvahendatud koekahjustusi, eriti kopsudes.
Autori kaastööd:
Kontseptualiseerimine, ZAA; kirjutamine – algse eelnõu ettevalmistamine, ZAA; kirjutamine – kokkuvõte ja 1. jaotis, SMA-B.; kirjutamine – 2. jagu, HA; kirjutamine – 3. jagu, NSA-S.; kirjutamine – 4. jagu, AAA; kirjutamine – 5. jagu, AZA; viited, ülevaade ja toimetamine, ZAA Kõik autorid on käsikirja avaldatud versiooni läbi lugenud ja sellega nõustunud.
Rahastamine:
See uuring ei saanud välist rahastamist.
Institutsioonilise ülevaatenõukogu avaldus:
Ei kohaldata.
Teadliku nõusoleku avaldus:
Ei kohaldata.
Andmete kättesaadavuse avaldus:
Ei kohaldata.
Huvide konfliktid:
Autorid ei kinnita huvide konflikti.
Viited
1. Anderson, EJ; Campbell, JD; Creech, CB; Frenck, R.; Kamidani, S.; Munoz, FM; Nachman, S.; Spearmanet, P. Coronavirus disease 2019 (COVID-19) vaktsiinide levik: miks on lapsed neutraalses olukorras? Clin. Nakata. Dis. 2020, 73, 336–340. [CrossRef]
2. McGown, RJ; Cennimo, DJ Coronavirus Disease 2019 (COVID-19) lastel. Internetis saadaval: https://emedicine.medscape. com/article/2500132-ülevaade (vaadatud 10. veebruaril 2022).
3. Mayo kliiniku töötajad. COVID-19 imikute ja laste seas. Saadaval veebis: https://www.mayoclinic.org/diseases-conditions/ coronavirus/in-depth/coronavirus-in-babies-and-children/art-20484405 (juurdepääs 7. juulil 2022).
4. Peppers, B. Miks erinevad imikute, laste, teismeliste ja täiskasvanute vaktsiiniannused – immunoloog selgitab, kuidas teie immuunsüsteem küpsedes muutub. Vestlus.
5. Elahi, SH Vastsündinute ja laste immuunsüsteem ja COVID-19: kallutatud immuuntolerantsi ja resistentsuse strateegia. J. Immunol. 2020, 205, 1990–1997. [CrossRef] 6. Cao, Q.; Chen, YC; Chen, CL; Chiu, CH SARS-CoV-2 infektsioon lastel: ülekande dünaamika ja kliinilised omadused. J. Formos. Med. Assoc. 2020, 119, 670–673. [CrossRef] [PubMed]
7. Guan, WJ; Ni, ZY; Hu, Y.; Liang, WH; Ou, CQ; Tema, JX; Liu, L.; Shan, H.; Lei, CL; Hui, DSC; et al. Hiina Covidi meditsiinilise ravi eksperdirühm-19. 2019. aasta koroonaviiruse haiguse kliinilised tunnused Hiinas. N. Ingl. J. Med. 2020, 382, 1708–1720. [CrossRef]
8. Behnke, JM; Barnard, CJ; Wakelin, D. Krooniliste nematoodiinfektsioonide mõistmine: evolutsioonilised kaalutlused, praegused hüpoteesid ja edasiminek. Int. J. Parasitol. 1992, 22, 861–907. [CrossRef] [PubMed]
9. Medžitov, R.; Schneider, DS; Soares, MP Haigustaluvus kui kaitsestrateegia. Teadus 2012, 335, 936–941. [CrossRef]
10. Yu, JC; Khodadadi, H.; Malik, A.; Davidson, B.; Salles, EDSL; Bahatia, J.; Hale, VL; Baban, B. Vastsündinute ja imikute kaasasündinud immuunsus. Ees. Immunol. 2018, 9, 1759–1778. [CrossRef]
11. Fidel, PL, juunior; Noverr, MC Kas mitteseotud nõrgestatud elusvaktsiin võiks olla ennetav meede COVID-19 infektsiooniga seotud septilise põletiku leevendamiseks? mBio 2020,11, e00907-20. [CrossRef] [PubMed]
12. Elahi, S.; Ertelt, JM; Kinder, M.; Jaing, TT; Zhang, X.; Xin, X.; Chaturvedi, V.; Stronh, BS; Qualls, JE; Steinbrecher, KA; et al. Immunosupressiivsed CD71 pluss erütroidrakud kahjustavad vastsündinu peremeesorganismi kaitset infektsiooni vastu. Loodus 2013, 504, 158–162. [CrossRef]
13. Hoffmann, M.; Kleine-Weber, H.; Schroeder, S.; Kruger, N.; Herrler, T.; Erichsen, S.; Schiergens, TS; Herrler, G.; Wu, NH; Nitsche, A. SARS-CoV-2 rakkude sisenemine sõltub ACE2-st ja TMPRSS2-st ning seda blokeerib kliiniliselt tõestatud proteaasi inhibiitor. Cell 2020, 181, 271–280.e8. [CrossRef]
14. Guo, J.; Huang, Z.; Lin, L.; Lv, J. 2019. aasta koroonaviirushaigus (COVID{2}}) ja südame-veresoonkonna haigused: seisukoht angiotensiini konverteeriva ensüümi inhibiitorite/angiotensiini retseptori blokaatorite võimalikust mõjust ägeda respiratoorse sündroomi koroonaviiruse 2 infektsioonide tekkele ja raskusastmele. J. Am. Süda Assoc. 2020, 9, e016219. [CrossRef] [PubMed]
15. Bhat, BV; Ravikumar, S. Vastsündinute COVID{1}} nakkuse väljakutsed. India J. Pediatr. 2020, 87, 577–578. [CrossRef] [PubMed]
16. Zhang, H.; Baker, A. Rekombinantne inimese ACE2: angiotensiin II kõrvaldamine ARDS-ravis. Crit. Care 2017, 21, 305. [CrossRef] [PubMed]
17. Wu, Z.; McGoogan, JM Hiinas 2019. aasta koronaviirushaiguse (COVID-19) puhangu tunnused ja olulised õppetunnid. JAMA 2020, 323, 1239–1242. [CrossRef] [PubMed]
18. Livingston, E.; Bucher, K. Coronavirus Disease 2019 (COVID-19) Itaalias. JAMA 2020, 323, 1335. [CrossRef]
19. CDC COVID-19 reageerimismeeskond. Koronaviirushaigus 2019 lastel – Ameerika Ühendriigid, 12. veebruar – 2. aprill 2020. Morb. Mortal Wkly. Vabariik 2020, 69, 422–426. [CrossRef]
20. Walter, EB; Talaat, KR; Sabharwal, CH; Gurtman, A.; Lockhart, S.; Paulsen, GC; Barnett, ED; Muñoz, FM; Maldonado, Y.; Pahud, BA; et al. BNT162b2 Covid-19 vaktsiini hindamine 5–11-aastastel lastel. N. Ingl. J. Med. 2022, 386, 35–46. [CrossRef]
21. Nussbaum, C.; Gloning, A.; Pruenster, M.; Frommhold, D.; Bierschenk, S.; Genzel-Boroviczeny, O.; von Andrian, UH; Quackenbush, E.; Sperandio, M. Neutrofiilide ja endoteeli adhesiivne funktsioon inimese loote ontogeneesi ajal. J. Leukoc. Biol. 2013, 93, 175–184. [CrossRef]
22. Filias, A.; Theodorou, GL; Mouzopoulou, S.; Varvarigou, AA; Mantagos, S.; Karakantza, M. Neutrofiilide ja monotsüütide fagotsüütiline võime vastsündinutel. BMC Pediatr. 2011, 11, 29. [CrossRef] [PubMed]
23. Walker, JM; Slifka, MK T-rakkude mälu pikaealisus pärast ägedat viirusinfektsiooni. Adv. Exp. Med. Biol. 2010, 684, 96–107. [CrossRef]
24. Förster-Waldl, E.; Sadeghi, K.; Tamandl, D.; Gerhold, B.; Hallwirth, U.; Rohrmeister, K.; Hayde, M.; Prusa, AR; Herkner, K.; Boltz-Nitulescu, G.; et al. Monotsüütide teemaksutaolise retseptori 4 ekspressioon ja LPS-indutseeritud tsütokiinide tootmine suurenevad gestatsioonilise vananemise ajal. Pediatr. Res. 2005, 58, 121–124. [CrossRef] [PubMed]
25. Yan, SR; Qing, G.; Byers, DM; Stadnyk, AW; Al-Hertani, W.; Bortolussi, R. MyD88 roll vastsündinud mononukleaarsete rakkude poolt vastusena lipopolüsahhariidile vähenenud kasvajanekroosifaktor-alfa tootmisel. Nakata. Immun. 2004, 72, 1223–1229. [CrossRef] [PubMed]
26. Sadeghi, K.; Berger, A.; Langgartner, M.; Prusa, AR; Hayde, M.; Herkner, K.; Pollak, A.; Spittler, A.; Forster-Waldl, E. Enneaegsete ja tähtaegsete vastsündinute infektsioonikontrolli ebaküpsus on seotud teemaksutaoliste retseptorite signaalimise halvenemisega. J. Infect. Dis. 2007, 195, 296–302. [CrossRef]
27. Al-Hertani, W.; Yan, SR; Byers, DM; Bortolussi, R. Inimese vastsündinud polümorfonukleaarsetel neutrofiilidel on vastusena lipopolüsahhariidile vähenenud MyD88 tase ja nõrgestatud p38 fosforüülimine. Clin. Uurige. Med. 2007, 30, E44–E53. [CrossRef]
28. Blahnik, MJ; Ramanathan, R.; Riley, CR; Minoo, P. Lipopolüsahhariidist põhjustatud tuumori nekroosifaktor-alfa ja IL-10 tootmine kopsumakrofaagide poolt enneaegsetelt ja tähtaegsetelt vastsündinutelt. Pediatr. Res. 2001, 50, 726–731. [CrossRef] [PubMed]
29. Willems, F.; Vollstedt, S.; Suter, M. Vastsündinute DC fenotüüp ja funktsioon. Eur. J. Immunol. 2009, 39, 26–35. [CrossRef]
30. Schüller, SS; Sadeghi, K.; Wisgrill, L.; Dangl, A.; Diesner, SC; Prusa, AR; Klebermasz-Schrehof, K.; Greber-Platzer, S.; Neumüller, J.; Helmer, H.; et al. Enneaegsetel vastsündinutel on muutunud plasmatsütoidsete dendriitrakkude funktsioon ja morfoloogia. J. Leukoc. Biol. 2013, 93, 781–788. [CrossRef]
For more information:1950477648nn@gmail.com