Bu-Shen-Huo-Xue ekstrakti neuroprotektiivne toime kõrge glükoosisisaldusega indutseeritud apoptoosi vastu PC12 rakkudes
Mar 09, 2022
Rohkem informatsiooni:ali.ma@wecistanche.com
Shao-Yang Zhao, Xin Dong, Peng-Fei Tu, Ke-Wu Zeng, Xue-Mei Wang
1 Traditsioonilise ja lääne meditsiini integratsiooni uurimisstuudio, esimene haigla, Pekingi ülikool, Peking, Hiina.
2 Looduslike ja biomimeetiliste ravimite osariigi võtmelabor, Farmaatsiateaduste kool, Pekingi Ülikool, Peking, Hiina.
Esiletõstmised
Kõrge glükoosisisaldusega (HG) põhjustatud neurotoksilisus on seotud patoloogiagadiabeetikentsefalopaatia (DE). Meie uuringus on Bu-Shen-Huo-Xue ekstrakt (BSHX), polütaimne valem,neuroprotektiivneaktiivsus HG-indutseeritud PC12 rakkudele ja võimalikud mehhanismid võivad olla seotud reaktiivsete hapnikuliikide (ROS) tekke pärssimisega, samuti mitokondrite poolt vahendatud kaspaasi ja JNK/p38 MAPK signaaliradadega. See uuring pakub paljutõotavat ainet DE raviks kliinilistes rakendustes.

Klõpsake tsistanche ekstrakti eeliste ja Cistanche neerude jaoks
Cistancheon tuntud toniseeriv ravimtaim, mis võib toita ja kaitstaneerud. Traditsioonilise hiina meditsiini teooriasCistancheon parim ravimtaimneerud.Cistancheon rikas ehhinakosiidide, akteosiidide ja flavonoidide poolest. Need tõhusad koostisosadCistanchesaab vähendadaneerudraku apoptoos ja suurenemineneerudrakkude proliferatsioon. SeetõttuCistancheonlooduslik neerulisand.

Abstraktne
Eesmärk: uurida polütaimse koostise Bu-Shen-Huo-Xue (BSHX) ekstrakti neuroprotektiivset toimet kõrge glükoosisisaldusega (HG) indutseeritud neurotoksilisuse vastu PC12 rakkudes. Meetodid: viidi läbi rakkude elujõulisuse test, laktaatdehüdrogenaasi (LDH) test, reaktiivsete hapnikuliikide (ROS) tuvastamine, Hoechst 33258, akridiinoranži (AO)/etiidiumbromiidi (EB) topeltvärvimine ja mitokondriaalse membraani potentsiaali (MMP) analüüs. Lisaks tuvastati Western blot analüüsiga Bax, Bcl-2, kaspaas-3, lõhustatud kaspaas-3, PARP, lõhustatud PARP, tsütokroom c ja mitogeen-aktiveeritud proteiinkinaasid (MAPK-d). Tulemused: BSHX ekstrakt suurendas rakkude elujõulisust ja vähendas LDH leket kontsentratsioonist sõltuval viisil HG-indutseeritud PC12 rakkudes. Veelgi enam, BSHX ekstrakt vähendas rakusisese ROS-i taset, suurendas mitokondriaalse membraani potentsiaali, reguleeris Baxi ja Bcl-2 ekspressioone ning pärssis tsütokroom c vabanemist mitokondritest. Lisaks nõrgendas BSHX ekstrakt kaspaasi -3 ja PARP aktivatsiooni ning inhibeeris c-Jun N-terminaalse kinaasi (JNK) ja p38 MAPK-de fosforüülimist. Järeldus: BSHX ekstraktil oli märkimisväärne neuroprotektiivne toime HG-indutseeritud apoptoosile PC12 rakkudes. Seda efekti võib seostada nii ROS-i tekke kui ka mitokondrite vahendatud kaspaasi ja JNK / p38 MAPK signaaliradade pärssimisega.

Märksõnad:diabeetiline entsefalopaatia, traditsiooniline hiina meditsiin, Bu-Shen-Huo-Xue ekstrakt,neuroprotektiivne, kõrge glükoosisisaldus
Lühend: AO: akridiinapelsin; BSHX: Bu-Shen-Huo-Xue; DE: diabeetiline entsefalopaatia; DM: Diabeet Mellitus; DMSO: dimetüülsulfoksiid; EB: etiidiumbromiid; ERK: ekstratsellulaarsed reguleeritud proteiinkinaasid; HG: kõrge glükoosisisaldus; JNK: c-Jun N-terminaalne kinaas; LDH: laktaatdehüdrogenaas; MAPK-d: mitogeen-aktiveeritud proteiinkinaasid; MWP: Wu-Zi-Yan-Zongi retsept; MTT: 3-[4, 5-dimetüültiasool-2-üül] 2, 5-difenüültetrasooliumbromiid; PBS: fosfaatpuhvri soolalahus; PBST: fosfaatpuhverdatud soolalahus, 0,1 protsenti Tween 20; ROS: Reaktiivsed hapnikuliigid; T2DM: 2. tüüpi suhkurtõbi; TCM: traditsiooniline hiina meditsiin
Taust
Viimastel aastatel on laialdast tähelepanu pälvinud diabeetiline entsefalopaatia (DE), mis on kesknärvisüsteemis (KNS) esinev suhkurtõve (DM) tüsistus. DE võib olla seotud mitme riskiteguriga, nagu diabeedi vanus, kestus ja glükeemiline kontroll [1, 2]. DE kliinilisteks ilminguteks on morfoloogilised ja füsioloogilised muutused ajus ning sellest tulenevad kognitiivsed düsfunktsioonid. Hüperglükeemia, oksüdatiivne stress ja krooniline põletik võivad olla DE olulised patogeensed põhjused [3]. Kuigi üha rohkem katseid on näidanud, et pikaajaline püsiv hüperglükeemia võib kiirendada aju vananemist, on DE täpne patogenees uurimata.
Apoptoos on programmeeritud rakusurm, mida kontrollivad geenid, et säilitada mikrokeskkonna stabiilsus. Apoptoosiga seotud valkude hulka kuuluvad perekond Bcl{0}}, kaspaasid, p53 jne. Bcl-2 perekond on jagatud kahte kategooriasse, millest üks soodustab rakusurma, nagu Bax, ja teine on apoptoosile vastu. nagu Bcl-2. Nad võivad reguleerida apoptoosi kaspaasi signaaliraja kaudu, mis on kaspaasi [4-6] pöördumatu lõpliku hüdrolüüsi substraadi kaskaadvõimendusreaktsioon. Lisaks on uuringud näidanud, et kõrge glükoosisisaldusega (HG) indutseeritud apoptoos on seotud mitokondriaalse düsfunktsiooni, DNA kahjustuse ja reaktiivsete hapnikuliikide (ROS) liigse tootmisega [7]. Uuring diabeetiliste hiirtega näitas, et adenosiin-5'-monofosfaadi (AMP) aktiveeritud proteiinkinaas (AMPK), rakusisene energia- ja stressiretseptor, võib pärssida ROS-vahendatud apoptoosi. Lisaks on üha rohkem tõendeid näidanud, et mitogeen-aktiveeritud proteiinkinaaside (MAPK-de) inhibeerimine võib olla kasulik neuronaalse apoptoosi pärssimisel. Teine aruanne näitas, et c-Jun N-terminaalne kinaas (JNK), ekstratsellulaarsed reguleeritud valgu kinaasid (ERK), p38 MAPK signaalirajad võivad potentsiaalselt reguleerida neuronaalset apoptoosi [8, 9].

Hiina traditsioonilise meditsiini teooria põhjal.neerudessentsipuudust ja vere staasi peetakse DE peamiseks patogeneesiks. Seetõttu strateegia toitmineneerudja aktiveerivat verd kasutatakse tavaliselt DE kliinilistes rakendustes. Varasemad uuringud võivad kinnitada, et modifitseeritud Wu-Zi-Yan-Zongi retsept (MWP), retsept, mille eesmärk on toita.neerud, võib parandada kognitiivseid häireid ja kaitsta neuroneid, vähendades A toksilisust [10, 11]. Bu-Shen-Huo-Xue (BSHX) retsept, millesse on lisatud MWP alusel kaani, on spetsiaalselt koostatudtoitaneerudja aktiveerida verd. Hiljuti on uuringud näidanud, et BSHX-i retsept võib parandada DM-i patsientide mälu halvenemise sündroomi, mis viitab võimsatele neuroprotektiivsetele omadustele [12]. BSHX-i üksikasjalik farmakoloogiline mehhanism jääb siiski ebaselgeks. Selles uuringus on meie eesmärk jälgida BSHX ekstrakti kaitsvat toimet HG-indutseeritud PC12 rakkudele ja uurida võimalikke molekulaarseid mehhanisme.
meetodid
Materjalid ja reaktiivid
Kõik ravimtaimed osteti ettevõttelt Kang Ren Tang Chinese Medicine Co., Ltd. (Peking, Hiina) ja nende autentsuse kinnitas farmakognostik dr PF Tu vastavalt Hiina farmakopöale (The Pharmacopoeia Commission of PRC, 2010). 3- [4, 5-Dimetüültiasool-2-üül] 2, 5-difenüültetrasooliumbromiid (MTT) pärines ettevõttest Sigma Chemical Co. (Saint Louis, MO, USA). Laktaatdehüdrogenaasi (LDH) testikomplekt osteti Nanjing Jiancheng Bioengineering Institute'ist. (Nanjing, Jiangsu, Hiina). Akridiinoranži (AO)/etiidiumbromiidi (EB) topeltplekikomplekt ja Hoechst 33258 saadi firmalt Solar Co., Ltd. (Peking, Hiina). Mitokondriaalse membraani potentsiaali analüüsi komplekt koos JC-1, 2, 7-diklorofluorestseiindiatsetaadiga (DCFH-DA) osteti ettevõttest Beyotime Institute of Biotechnology (Shanghai, Hiina). Kaspaasi-3, lõhustatud kaspaasi-3, PARP, lõhustatud PARP, tsütokroom C, Bax, Bcl-2, p38, p-p38, ERK, p-ERK, JNK, p primaarsed antikehad -JNK ja -tubuliin saadi ettevõttest Cell signaling Technology (Boston, MA, USA).
BSHX ekstrakti valmistamine
BSHX koosneb seitsmest meditsiinilisest komponendist (tabel 1). BSHX ekstrakti valmistamiseks Tsizi (Cuscuta Chinensis Lam.), Gouqi (Lycium barbarum L.), Fupenzi (Rubus chingii Hu), Wuweizi (Schizandra Chinensis (Turcz.) Baill.), Cheqiancao (Plantago Asiatica L.), Shuizhi (Shuizhi Hirudo nipponica Whitman.) ja Yinyanghuo (Epimedium brevican Maxim.) segati vahekorras 8:8:4:1:2:1:8 ja sukeldati 30 minutiks 10-kordsesse (maht/massi) destilleeritud vette. , seejärel keedeti 1 h ja keedeti uuesti 1 h kogumahus 5 korda (v/w) destilleeritud vees. Supernatandid ühendati ja kuivatati lüofiliseerimisega. Lõplik kuivatatud ekstrakt moodustas 25% (w/w) toorürtide massist ja vautšeri näidis deponeeriti Hiinas Pekingis asuvas Pekingi ülikooli terviseteaduste keskuse kaasaegses traditsioonilise hiina meditsiini uurimiskeskuses.
Rakukultuur
Roti feokromotsütoomi rakuliinid (PC12 rakud) saadi Peking Unioni meditsiinikolledži rakupangast (Peking, Hiina) ja neid kasvatati Dulbecco modifitseeritud kotkasöötmes (DMEM) (Macgene, Peking, Hiina), millele oli lisatud 10 protsenti veise loote seerumit (Biowest, Prantsusmaa). ) ja 1 protsenti penitsilliini-streptomütsiini (100×, Macgene, Peking, Hiina) niisutatud inkubaatoris, mis sisaldab 95 protsenti õhku ja 5 protsenti CO2 37 kraadi juures.
Proovi ravi
Eelkatses töödeldi PC12 rakke ainult BSHX ekstraktiga (20, 50, 100 mg/l) 48 tundi, et hinnata tsütotoksilisust. BSHX ekstrakti neuroprotektiivse toime analüüsiks kõrge glükoosisisaldusega (HG) indutseeritud neurotoksilisuse vastu töödeldi PC12 rakke koos BSHX ekstraktiga (20, 50, 100 mg/l) ja HG (75 mM) 48 tundi, millele järgnes MTT test. rakkude elujõulisuse jaoks. Kõik teised testid viidi läbi samades tingimustes BSHX ekstrakti kontsentratsiooni vahemikus 20 kuni 100 mg/l.
Rakkude elujõulisuse test
PC12 rakud külvati 96-süvendiplaatidele tihedusega 3,5 × 10³ rakku süvendi kohta. Pärast 48-tunnist inkubeerimist BSHX ekstraktiga (koos HG-ga või ilma) eemaldati supernatant ja lisati MTT lahus (0,5 mg/ml). Pärast inkubeerimist 37 kraadi juures 4 tundi, MTT lahus eemaldati ja rakud lahustati dimetüülsulfoksiidis (DMSO) 5 minutiks loksutamiseks. Optiline tihedus (OD) mõõdeti 570 nm juures, kasutades mikroplaadilugejat. Rakkude elujõulisus (protsent)=[OD (ravi) – OD (tühi)]/ [OD (töötlemata kontroll) – OD (tühi)] × 100 protsenti .

LDH analüüs
PC12 rakke kultiveeriti ja stimuleeriti HG ja BSHX ekstraktiga töötlemiseks, nagu eelnevalt kirjeldatud. Seejärel tuvastati rakkudest vabanenud LDH, kasutades kaubanduslikku LDH komplekti vastavalt tootja juhistele. Neeldumist mõõdeti 450 nm juures. LDH (U/L)=[OD (töötlus) – OD (tühi)] / [OD (standard) – OD (tühi)] × 0,2 (mmol/L) × 1000.
Hoechst 33258 värvimine ja AO/EB värvimine
Hoechst 33258 värvimiseks fikseeriti rakud 4% paraformaldehüüdiga 30 minutit. Seejärel pesti rakke 3 korda fosfaatpuhvri soolalahusega (PBS) ja inkubeeriti Hoechst 33258 töölahusega (1 ug/ml) pimedas 30 minutit toatemperatuuril. Pildid jäädvustati fluorestsentsmikroskoobiga (IX73, Olympus, Jaapan) ergastuse lainepikkusel 352 nm/emissiooni lainepikkusel 461 nm. AO/EB värvimiseks eemaldage sööde 96-süvendiga plaatidelt ja lisage AO/EB segu (100 ug/mL AO ja 100 ug/mL EB segatud) 5 minutiks pimedas toatemperatuuril. Seejärel pesti rakke PBS-ga 3 korda. Rakud visualiseeriti fluorestsentsmikroskoobiga ergastuslainepikkusel 490 nm/emissiooni lainepikkus 530 nm AO värvimisel ja ergastuse lainepikkusel 520 nm/emissiooni lainepikkusel 590 nm EB värvimisel.
Intratsellulaarne ROS-i tuvastamine
Intratsellulaarseks ROS-i tuvastamiseks külvati PC12 rakud 6-süvendiplaatidele tihedusega 5 × 10⁵ ja töödeldi HG ja BSHX ekstraktiga 24 tundi. Pärast 24-tunnist inkubeerimist pesti PC12 rakke seerumivaba Dulbecco modifitseeritud kotkasöötmega 3 korda ja lisati 10 μΜ 2', 7'-diklorofluorestseiindiatsetaati (DCF-DA), mis oksüdeeritakse fluorestseeruvaks 2', 7'-diklorofluorestseiiniks. (DCF) hüdroperoksiidide abil 37 kraadi juures 30 minutit pimedas. Seejärel pesti rakke 3 korda külma PBS-ga ja resuspendeeriti PBS-is. ROS-i rakusisene tase tuvastati keskmise fluorestsentsi intensiivsuse mõõtmisega voolutsütomeetria abil (BD FACSCaliburTM, USA). Ergastuse/emissiooni lainepikkused olid 488/525 nm. Ühe proovi kohta loendati vähemalt 10,{23}} sündmust. Väärtused väljendati keskmise neeldumisena, mis oli normaliseeritud kontrollväärtuse protsendiga.
Mitokondriaalse membraani potentsiaali test
Mitokondriaalset depolarisatsiooni hinnati kaubandusliku JC-1 testikomplekti abil. Pärast töötlemist HG ja BSHX ekstraktiga inkubeeriti rakke JC-1 töölahusega (1 ×) 37 kraadi juures 15 minutit pimedas. Seejärel eemaldage supernatant ja peske rakke 2 korda JC-1 puhverlahusega (1 ×). Rakud visualiseeriti fluorestsentsmikroskoobiga ergastuslainepikkusel 460 nm/emissiooni lainepikkus 530 nm JC-1 monomeeri puhul (tuvastatud depolariseeritud mitokondritega rakkudes) ja ergastuse lainepikkusel 520 nm/emissiooni lainepikkusega 590{10} 590{nm. }} polümeer (esineb polariseeritud mitokondrites). Rohelise (monomeerse) fluorestsentsiga rakkudel peeti depolariseeritud mitokondreid; punase (polümeerse) fluorestsentsiga rakkudel peeti normaalseid mitokondreid.
Western blot analüüs
PC12 rakud koguti ja lüüsiti külmas RIPA puhvris koos 1 × kokteiliproteaasi inhibiitoriga. Supernatant koguti kiire tsentrifuugimisega kiirusel 12, 000 p/min 10 min 4 kraadi juures. Valgu kontsentratsioonid määrati Bradfordi testiga. Tsütokroom c analüüsi jaoks eraldati tsütosooli ja mitokondritega rikastatud fraktsioonid Mitochondria Isolation Kit (Pierce, Rockford, USA) abil. Teiste valkude puhul eraldati kogu rakulüsaadid SDS-PAGE abil (10 protsenti -15 protsenti) ja kanti üle polüvinülideenfluoriidi (PVDF) membraanidele. Seejärel blokeeriti polüvinülideenfluoriidmembraanid 5% rasvavaba piimaga ja inkubeeriti koos näidatud primaarsete antikehadega 4 kraadi juures üleöö. Membraanid pesti kolm korda PBST-ga (fosfaatpuhverdatud soolalahus, 0,1 protsenti Tween 20) ja inkubeeriti sekundaarsete antikehadega toatemperatuuril 2 tundi. Seejärel pesti membraane veel kolm korda PBST-ga ja visualiseeriti täiustatud kemoluminestsentssubstraadi abil ning skaneeriti Kodak Digital Imaging Systemiga (Gel Logic 2200Pro, Kodak, USA).
Statistiline analüüs
Kõik väärtused on väljendatud keskmisena ± standardhälbe (SD). Keskmiste väärtuste erinevuste olulisus määrati ühesuunalise dispersioonanalüüsi (ANOVA) abil, kasutades sotsiaalteaduste statistikapaketti (SPSS 16.0 tarkvara). P < 0,05="" võrreldes="" kontrollrühmaga="" loeti="" statistiliselt="">
Tulemused
BSHX ekstrakt kaitseb PC12 rakke HG-indutseeritud rakukahjustuse eest
Et uurida, kas BSHX ekstrakt võib kaitsta PC12 rakke HG solvamise eest, töödeldi PC12 rakke erinevate BSHX ekstrakti kontsentratsioonidega (20, 50 ja 100 mg/L) 48 tundi HG (75 mM) tingimustes. Rakkude elujõulisuse hindamine MTT testi abil näitas, et HG solvang põhjustas PC12 rakkude elujõulisuse olulise vähenemise (rakkude elujõulisus oli ligikaudu 56,9 ± 6,7 protsenti) ja et BSHX-ekstraktiga töötlemine takistas oluliselt rakusurma kontsentratsioonist sõltuval viisil. Rakkude elujõulisus tõusis 87,8 ± 9,2 protsendini, kui rakke töödeldi koos BSHX ekstraktiga (100 mg/l) (joonis 1A). Laktaatdehüdrogenaas (LDH) vabaneb kahjustatud rakkudest ja seetõttu saab seda kasutada ka raku toksilisuse indikaatorina. Kooskõlas MTT testi tulemustega avastasime, et HG solvang suurendas oluliselt LDH vabanemist PC12 rakkudest ja ravi BSHX ekstraktiga takistas LDH vabanemist kontsentratsioonist sõltuval viisil (joonis 1B). Need tulemused viitavad sellele, et BSHX ekstrakt suurendab rakkude elujõulisust. HG-indutseeritud PC12 rakkudes.

BSHX ekstrakt inhibeerib PC12 rakkude apoptoosi kaspaasist-9/3-sõltuva raja kaudu
BSHX ekstrakti mõju määramiseks raku apoptoosile kasutasime apoptoosi tundliku analüüsina DNA värvi Hoechst 33258. Hoechst 33258-ga värvitud normaalsete rakkude tuumad näitasid ühtlast sinist fluorestsentsi, samas kui apoptootilised rakud, mis tekitasid tuumakromatiini pilvepüknoosi, näitasid hüperkromaatilisi ja tihedaid fluorestseeruvaid osakesi. Apoptoosi protsent arvutati apoptootiliste rakkude arvu ja rakkude koguarvu järgi. Meie andmed näitasid, et HG (75 mM) solvamine suurendas dramaatiliselt apoptootiliste rakkude osakaalu (51,7 ± 4,3 protsenti) ja BSHX ekstraktiga töötlemine kaitses märkimisväärselt HG-indutseeritud apoptoosi eest PC12 rakkudes (joonis 2A). Neid tulemusi toetas veelgi AO / EB topeltvärvimise analüüs. AO siseneb nii normaalsetesse kui ka apoptootilistesse rakkudesse ja kiirgab rohelist fluorestsentsi, samas kui EB siseneb ainult apoptootilistesse rakkudesse ja kiirgab punast fluorestsentsi [13]. AO/EB test näitas, et apoptootiliste rakkude protsent suurenes oluliselt pärast HG (75 mM) solvamist (47,8,7 ± 2,6 protsenti) ja vähenes BSHX ekstraktiga töötlemisel PC12 rakkudes (joonis 2B), mis viitab sellele, et BSHX ekstrakt võib tõhusalt pärsivad HG poolt indutseeritud PC12 rakkude apoptoosi.
Seejärel uurisime BSHX ekstrakti mõju kaspaas-3/PARP rajale, mis on mitokondritega seotud apoptoosi oluline rada [14]. Western blot näitas, et HG (75 mM) solvang suurendas märkimisväärselt kaspaasi -3 ja PARP aktiivsete vormide ekspressiooni ning vähendas kogu kaspaasi-3 ja PARP ekspressiooni PC12 rakkudes ning see mõju oli märgatavalt vastupidine. BSHX ekstraktiga töötlemisega (joonis 2C), mis viitab sellele, et BSHX ekstrakt kaitses tõhusalt PC12 rakke apoptoosi eest mitokondriaalsest sõltuva kaspaas-3/PARP raja reguleerimise kaudu.
BSHX ekstrakt inhibeerib intratsellulaarset ROS-i tootmist HG-indutseeritud PC12 rakkudes
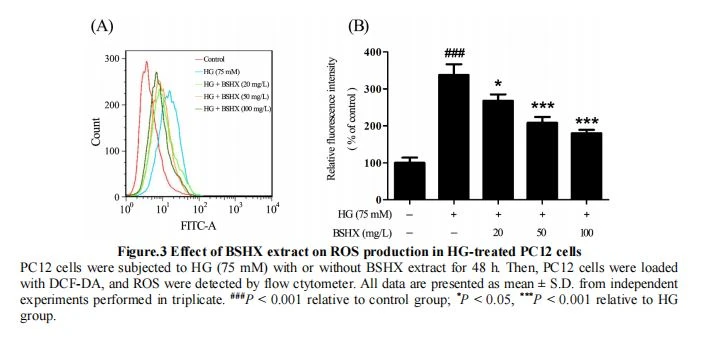
Kuna HG võib suurendada rakusisese ROS-i moodustumist [15], testisime intratsellulaarse ROS-i taset, et teha kindlaks, kas BSHX ekstrakt võib pärssida ROS-i teket. PC12 rakkudes, mis puutusid kokku 75 mM HG-ga 48 tundi, täheldati fluorestsentsi intensiivsuse 323-kordset suurenemist võrreldes kontrollrühmaga. Seevastu samaaegne töötlemine BSHX ekstraktiga vähendas oluliselt keskmist fluorestsentsi intensiivsust ligikaudu 0.76-, 0.{{10}} ja 0.{101} {12}} korda, mis näitab, et BSHX ekstrakt võib pärssida HG poolt indutseeritud ROS-i tootmist (joonised 3A, B).

BSHX ekstrakt säilitab mitokondriaalse homöostaasi HG-indutseeritud PC12 rakkudes, reguleerides Baxi ja Bcl-2 ekspressiooni
Mitokondriaalse membraani potentsiaal on mitokondriaalse funktsiooni oluline parameeter, mida kasutatakse rakkude tervise indikaatorina. JC-1 on lipofiilne katioonne värvaine, mis võib selektiivselt siseneda mitokondritesse ja membraanipotentsiaali kasvades muuta värvi pöörduvalt rohelisest punaseks. Tervetes kõrge mitokondriaalse membraanipotentsiaaliga rakkudes moodustab JC-1 spontaanselt komplekse, mida tuntakse intensiivse punase fluorestsentsiga J-agregaatidena. Teisest küljest jääb madala mitokondriaalse membraanipotentsiaaliga apoptootilistes rakkudes JC -1 monomeersesse vormi, mis näitab ainult rohelist fluorestsentsi [16, 17]. Seetõttu võib rohelise fluorestsentsi ja punase fluorestsentsi suhe peegeldada mitokondriaalset depolarisatsiooni. Meie uuringus suurenes depolariseeritud mitokondritega (roheline fluorestsents) rakkude arv oluliselt pärast HG-d (75 mM) 48 tunni jooksul ja see suurenemine pöördus BSHX ekstraktiga töötlemisega kontsentratsioonist sõltuval viisil (joonis 4A).
Järgmisena tuvastasime tsütokroom c mitokondriaalsed ja tsütoplasmaatilised jaotused, mis on aktiveerimise kaspaasist sõltuva apoptoosi raja võtmemängija. Leidsime, et HG (75 mM) solvamine 48 tunni jooksul kutsus esile tsütokroom c dramaatilise translokatsiooni mitokondritest tsütoplasmasse ja seda ümberpaigutamist takistas oluliselt ravi BSHX ekstraktiga (joonis 4B), mis näitab, et BSHX ekstrakt võib pärssida tsütokroom c vabanemist. tsütokroom c mitokondritest.
Lisaks on Bcl{0}} perekonna valgud erinevate apoptootiliste radade olulised regulaatorid. Bcl-2 võib pärssida mitmesuguste tsütotoksiliste tegurite põhjustatud rakkude apoptoosi ja on tsütokroom c mitokondritest tsütoplasmasse vabanemise inhibiitor. Bax kui Bcl-2 perekonna liige on aga apoptoosi soodustav tegur. Apoptoosi esilekutsumisel migreerub Bax tsütoplasmast mitokondritesse ja hävitab mitokondriaalse terviklikkuse [5, 18]. Meie uuringus oli Bcl-2 valgu tase allareguleeritud ja Bax reguleeriti üles HG (75 mM) solvamisega 48 tunni jooksul. BSHX ekstrakti toime muutus kontsentratsioonist sõltuvaks (joonis 4C). Kõik need ülaltoodud tulemused viitasid sellele, et BSHX ekstrakt kaitses PC12 rakke HG-indutseeritud mitokondriaalse depolarisatsiooni eest, reguleerides Baxi ja Bcl ekspressiooni-2.
BSHX ekstrakti mõju raku apoptoosile JNK / p38 MAPK signaaliradade kaudu
Mõned uuringud on näidanud, et suurenenud ROS-i tootmist on seostatud MAPK radade aktiveerimisega, et vallandada raku apoptoos9 [19, 20]. Seega uurisime BSHX ekstrakti mõju mitogeen-aktiveeritud proteiinkinaasi (MAPK) signaaliülekande rajale, et teha kindlaks, kas BSHX ekstrakt võib nõrgendada HG-indutseeritud apoptoosi. Nagu on näidatud joonisel 5, suurendas 48-tunnine HG (75 mM) solvamine c-Jun NH2--terminaalse kinaasi (JNK) ja p38 fosforüülimist PC12 rakkudes, mida BSHX ekstrakt inhibeeris oluliselt kontsentratsioonis sõltuval viisil. Sarnast tulemust ei täheldatud aga ekstratsellulaarse reguleeritud proteiinkinaasi (ERK) MAPK puhul. Tulemused viitavad sellele, et BSHX ekstrakt võib pärssida HG-indutseeritud raku apoptoosi JNK / p38 MAPK signaaliradade kaudu.

Arutelu
Diabeetiline entsefalopaatia (DE) on II tüüpi suhkurtõve (T2DM) tavaline tüsistus. See võib põhjustada aju kognitiivseid häireid ja on II tüüpi suhkurtõvega patsientide suremuse ja puude oluline riskitegur kogu maailmas [3]. Seega on ülioluline uurida DE mehhanismi ning selle ennetus- ja ravistrateegiaid.
Hiinas on traditsioonilisi hiina ravimeid (TCM) kasutatud DM-i raviks juba aastaid ja neil on olnud tervendav toime. Mõned kliinilised uuringud näitavad, et neerude toitmisel ja aktiveerivatel verestrateegiatel põhinevad TCM-id võivad vere glükoosisisaldust alandada, soodustada vereringet ja parandada aju kognitiivset düsfunktsiooni. BSHX retsept on nende TCM-ide esindaja. Meie esialgne kliiniline uuring näitas, et BSHX-i retsept võib tõhusalt parandada veresuhkru, homotsüsteiini (HCY) ja kõrge tundlikkusega C-reaktiivse valgu (hs-CPR) sisaldust seerumis ning parandada kerge kognitiivse kahjustusega (MCI) diabeediga patsientide kognitiivset funktsiooni. [12]. Senise tõhususe ja farmakoloogilise mehhanismi tõestamiseks puuduvad aga tõendid.
Selles uuringus leidsime, et BSHX ekstrakt võib nõrgendada HG poolt indutseeritud rakkude elujõulisuse vähenemist, mõõdetuna MTT, LDH testiga. BSHX ekstrakti kaitsva toime edasiseks uurimiseks rakkude elujõulisusele uurisime apoptoosi Hoechst 33258 ja AO / EB värvimisanalüüsi abil. Tulemused näitasid, et BSHX ekstrakt võib oluliselt vähendada HG poolt indutseeritud apoptoosi. Apoptoosi markerina suurenesid kaspaas-3 ja PARP pärast HG-ga töötlemist märkimisväärselt, kuid BSHX ekstrakt pärssis nende pro-apoptootiliste tegurite aktiveerimist kontsentratsioonist sõltuval viisil. Ülaltoodud tulemused näitasid, et BSHX ekstraktil oli kaitsev toime HG poolt indutseeritud PC12 rakukahjustustele.
ROS tekib rakkude oksüdatiivse fosforüülimise protsessis ning selle produktsiooni suurenemine või antioksüdantsete süsteemide kahjustus võib põhjustada rakkudes oksüdatiivset stressi [21]. Uuringud on näidanud, et kõrge glükoosisisaldus võib põhjustada rakusisese ROS-i akumuleerumist ja lõpuks aktiivse apoptootilise signaaliraja. Ja diabeedi tüsistuste tavaline mehhanism on oksüdatiivne stress [22, 23]. Meie tulemused näitasid, et kõrge glükoosisisaldus võib põhjustada ROS-i suurenemist PC12 rakkudes, mis oli kooskõlas varasemate uuringutega [24]. Spekuleeritakse, et kõrge glükoosisisalduse toksilisust rakkudele võib saavutada ROS-indutseeritud apoptoosi kaudu. Mitokondrid on rakusisese ROS-i tootmise peamised kohad ja ka ROS-i rünnaku peamine sihtorgan [25]. Patoloogilistes tingimustes võib ROS-i kiire suurenemine põhjustada mitokondriaalset düsfunktsiooni, mitokondriaalse membraani potentsiaali kokkuvarisemist ja lõpuks viia raku apoptoosini [26]. Nii tuvastasime mitokondrite terviklikkuse. Meie tulemused näitasid, et kõrge glükoosisisaldus vähendas oluliselt mitokondriaalse membraani potentsiaali, suurendas Bax/Bcl-2 suhet, mis kontrollis mitokondriaalse läbilaskvuse üleminekupoori (MPTP) lülitumist, ja soodustas tsütokroom c lekkimist, samas kui BSHX ekstrakt võib need muudatused tagasi pöörata. Need viitavad sellele, et BSHX ekstrakti neuroprotektiivne toime HG-indutseeritud PC12 rakkude vastu võib tuleneda mitokondrite terviklikkuse säilitamisest.
MAPK signaalirada mängib samuti olulist rolli raku apoptoosis. JNK, ERK ja p38 MAPK on MAPK perekonna enim uuritud liikmed. Nende peamine toimeviis on nende spetsiifiliste saitide fosforüülimine, reguleerides seeläbi raku apoptoosi [8, 27, 28]. Lisaks on uuringud näidanud, et ROS-i liigne tootmine võib vallandada p38MAPK fosforüülimise [29-31] ja ROS võib indutseerida või vahendada MAPK radade aktivatsiooni [32]. Mitmed rakulised stiimulid, mis indutseerivad ROS-i tootmist ka paralleelselt, võivad aktiveerida MAPK radu mitmes rakutüübis [32, 33]. Võimalikud mehhanismid MAPK aktiveerimiseks ROS-i poolt võivad hõlmata MAPK fosfataaside inaktiveerimist ja lagunemist, mis hoiavad rada inaktiivses olekus [19]. Teisest küljest, et täiendavalt kinnitada, kas ROS-i genereerimine aktiveeris MAPK radu, töödeldi rakke ROS-i akumuleerumise vältimiseks antioksüdantidega (nt NAC, ROS-i püüdur). Ja tulemused näitasid, et MAPK aktiveerimine oli pärast raku stimuleerimist rakuliste stiimulitega peaaegu pärsitud [32, 33], mis näitab MAPK radade ROS-i inaktiveerimise kaasamist. Lisaks näitasid uuringud, et kui rakke töödeldi spetsiifilise JNK inhibiitoriga SP600125, võib Cardiotoxin III indutseeritud apoptoosi blokeerida [34]. Meie eelmine uuring näitas, et modifitseeritud Wu-Zi-Yan-Zongi retsept (MWP) võib pärssida ERK/p38 MAPK aktivatsiooni A-aktiveeritud BV2 mikroglias [10]. Kuid selles uuringus leidsime, et BSHX ekstrakt võib pärssida JNK ja p38 MAPK fosforüülimist ning me ei saavutanud p-ERK-ga sama tulemust. Me oletame, et kaanid mängivad BSHX ekstraktis erinevat rolli. Tulemused viitavad sellele, et teine BSHX ekstrakti kaitsemehhanism apoptoosi vastu HG-indutseeritud PC12 rakkudes võib olla JNK / p38 MAPK signaaliradade reguleerimise kaudu.
Järeldus
BSHX ekstrakt, polütaimne valem, näitab neuroprotektiivset toimet PC12 rakkudele HG solvamise vastu. BSHX ekstrakt inhibeeris tõhusalt HG-indutseeritud PC12 rakkude apoptoosi, vähendades rakusisest ROS-i teket, säilitades mitokondriaalse membraani terviklikkuse ning blokeerides kaspaasi-3 ja JNK/p38 MAPK signaaliülekanderadu (joonis 6). Meie tulemused näitavad ühiselt, et BSHX ekstrakt on paljulubav aine DE raviks kliinilistes rakendustes.

Autorite kaastööd
Katsete väljamõtlemine ja kavandamine: Zeng KW, Wang XM. Katse viis läbi: Zhao SY. Analüüsitud andmeid: Zhao SY, Zeng KW ja Wang XM. Kaasatud reaktiivid/materjalid/analüüsitööriistad: Zhao SY, Dong X, Tu PF, Zeng KW ja Wang XM. Kirjutas patteri: Zhao SY.
Viited
1 Riederer P, Korczyn AD, Ali SS jt. Diabeedi aju ja tunnetus. J Neural Transm 2017, 124: 1-24.
2. Hamed SA. Ajukahjustus suhkurtõvega: tõendid, mehhanismid ja ravi tagajärjed. Expert Rev Clin Phar 2017, 10: 409-428.
3. Testa R, Bonfigli AR, Prattichizzo F, et al. "Metaboolse mälu" teooria ja hüperglükeemia varajane ravi diabeedi tüsistuste ennetamisel. Nutr 2017, 9: 437-445.
4. Ly JD, Grubb DR, Lawen A. Mitokondriaalse membraani potentsiaal (Δψm) apoptoosis; uuendus. Apoptosis 2003, 8: 115-128.
5. Aouacheria A, Baghdiguian S, Lamb HM, Huska JD, Pineda FJ, Harwick J M. Mitokondriaalse dünaamika ja elu või surma sündmuste ühendamine Bcl-2 perekonna valkude kaudu. Neurochem Int 2017, 109: 141-161.
6. Bernardi P, Scorrano L, Colonna R jt. Mitokondrid ja rakusurm. Mehhaanilised aspektid ja metodoloogilised küsimused. veebruar J 1999, 264: 687-701.
7. Yang L, Wu L, Du S jt. 1, 25- (OH) 2D3 inhibeerib MAPK/P38 raja kaudu kõrge glükoosist põhjustatud apoptoosi ja ROS-i tootmist inimese peritoneaalsetes mesoteelirakkudes. Mol Med Rep 2016, 14: 839-844.
8. Tabakman R, Jiang H, Schaefer E jt. Närvi kasvufaktori eeltöötlus nõrgendab hapniku- ja glükoosipuudusest põhjustatud c-Jun aminoterminaalse kinaasi 1 ja stressiga aktiveeritud kinaaside p38 ja p38 aktivatsiooni ning annab neuroprotektsiooni feokromotsütoomi PC12 mudelis. J Mol Neurosci 2004, 22: 237-250.
9. Zou W, Zeng J, Zhuo M, Xu W, Sun L, Wang J jt. Kaspaas-3 ja p38 mitogeen-aktiveeritud proteiinkinaasi osalemine koobaltkloriidi poolt indutseeritud apoptoosis PC12 rakkudes. J Neurosci Res 2002, 67: 837–843.
10. Yu Q, Song FJ, Chen JF jt. Modifitseeritud Wu-Zi-Yan-Zongi retsepti neuropõletikuvastased toimed amüloid-stimuleeritud BV2 mikroglias NF-κB ja ERK/p38 MAPK signaaliradade kaudu. Tõenditel põhinev täielik alternatiiv 2017, 2017: 1-10.
11. Zeng KW, Zhang T, Fu H jt. Modifitseeritud Wu-Zi-Yan-Zongi retsept, traditsiooniline Hiina polütaimne valem, pärsib lipopolüsahhariididest põhjustatud neuroinflammatoorseid protsesse roti astrotsüütides NF-κB ja JNK/p38 MAPK signaaliradade kaudu. Phytomed 2012, 19: 122-129.
12. Fu H, Lin WW, Wang H jt. Bushen Huoxue retsepti mõju 2. tüüpi diabeedi kergete tunnetushäirete ravile. Chin J Integr Trad West Med 2017, 37: 661-665.
13. Baskić D, Popović S, Ristić P jt. Inimese leukotsüütide tsükloheksimiidi poolt indutseeritud apoptoosi analüüs: fluorestsentsmikroskoopia, kasutades anneksiin V / propiidiumjodiidi versus akridiinoranž / etiidiumbromiid. Cell Biol. Int 2006, 30: 924–932.
14. Galluzzi L, Lópezsoto A, Kumar S jt. Kaspaasid ühendavad rakusurma signaali organismi homöostaasiga. Immunity 2016, 44: 221-231.
15. Hamed S, Brenner B, Roguin A. Lämmastikoksiid: võtmetegur endoteeli eellasrakkude düsfunktsionaalsuse taga diabeedi tüübi korral-2. Cardiovasc Res 2011, 91: 9-15.
16. Perelman A, Wachtel C, Cohen M jt. JC-1: Alternatiivsed ergastuslainepikkused hõlbustavad mitokondriaalse membraanipotentsiaali tsütomeetriat. Cell Death Dis 2012, 3: e430.
17. Perry SW, Norman JP, Barbieri J jt. Mitokondriaalse membraani potentsiaali sondid ja prootonite gradient: praktiline kasutusjuhend. Biotech 2011, 50: 98-115.
18. Chipuk JE, Green D R. Kuidas BCL-2 valgud kutsuvad esile mitokondriaalse välismembraani permeabilisatsiooni? Trends Cell Biol 2008, 18:157-164.
19. Son Y, Cheong YK, Kim NH jt. Mitogeeni aktiveeritud proteiinkinaasid ja reaktiivsed hapniku liigid: kuidas saab ROS aktiveerida MAPK radu? J Signal Transduct 2011: 792639.
20. Zhang L, Zhang Z, Chen F jt. Podofüllotoksiini aromaatsed heterotsüklilised estrid avaldavad ROS / MAPK signaaliraja kaudu inimese leukeemia K562 / ADR rakkudes MDR-vastast toimet. Eur J Med Chem 2016, 123:226-235.
21. Kanninen K, White AR, Koistinaho J jt. Glükogeeni süntaasi kinaasi-3 sihtimine Alzheimeri tõve oksüdatiivse stressi vastu võitlemise terapeutilise kasu saamiseks: Nrf2-ARE raja kaasamine. Int J Alzheimers Dis 2011, 2011: 985085.
22. Babižajev MA, Strokov IA, Novikov VV jt. Oksüdatiivse stressi roll diabeetilises neuropaatias: vabade radikaalide liikide teke glükatsioonireaktsioonis ja geenipolümorfismid, mis kodeerivad antioksüdantseid ensüüme diabeetilisele neuropaatiale geneetilisele tundlikkusele I tüüpi diabeediga patsientide populatsioonis. Cell Biochem Biophys 2015, 71: 1425-1443.
23. Volpe C, Villardelfino PH, Dos PA jt. Rakusurm, reaktiivsed hapniku liigid (ROS) ja diabeetilised tüsistused. Cell Death Dis 2018, 9: 119-127.
24. Chen K, Zhang M, Chen BD jt. Ginkgoliid B inhibeerib apoptoosi kõrge glükoosisisaldusega inimese nabaveeni endoteelirakkudes. Hiina farmakoloogiline bülletään 2017, 33: 378-383.
25. Goldsteins G, Keksa-Goldstein V, Ahtoniemi T jt. Superoksiidi dismutaasi kahjulik roll mitokondriaalses membraaniruumis. J Biol Chem 2008, 283: 8446-8452.
26. Cowan KJ, Storey KB. Mitogeen-aktiveeritud proteiinkinaasid: uued signaalirajad, mis toimivad rakulistes reaktsioonides keskkonnastressile. J Exp Bio 2003, 206: 1107.
27. Wu N, Lin X, Zhao X jt. MiR-125b toimib glioblastoomirakkudes onkogeenina ja pärsib raku apoptoosi p53 ja p38MAPK-st sõltumatute radade kaudu. Brit J Cancer 2013, 109: 2853.
28. Shi L, Yu X, Yang H jt. Täiustatud glükatsiooni lõpp-produktid kutsuvad esile inimese sarvkesta epiteelirakkude apoptoosi, tekitades reaktiivseid hapniku liike ning aktiveerides JNK ja p38 MAPK radu. Plus One 2013, 8: e66781.
29. Chung H, Kim E, Lee DH jt. Ghrelin inhibeerib apoptoosi hüpotalamuse neuronaalsetes rakkudes hapniku-glükoosi puuduse ajal. Endokrinoloogia 2007, 148: 148.
30. Palanivel K, Kanimozhi V, Kadalmani B. Verrucarin A muudab rakutsüklit reguleerivaid valke ja kutsub esile apoptoosi läbi reaktiivse hapniku liigist sõltuva p38MAPK aktivatsiooni inimese rinnavähi rakuliinis MCF-7. Kasvajabioloogia 2014, 35: 10159.
31. Hua X, Chi W, Su L jt. ROS-indutseeritud oksüdatiivne vigastus, mis on seotud seente keratiidi patogeneesiga p38 MAPK aktiveerimise kaudu. Sci Rep 2017, 7: 10421.
32. Mccubrey JA, Lahair MM, Franklin RA. Reaktiivsete hapnikuliikide poolt indutseeritud MAP kinaasi signaaliradade aktiveerimine. Antioxid Redox Signal 2006, 8: 1775-1789.
33. Torres M, Forman H. J. Redokssignalisatsioon ja MAP kinaasi rajad. Biofactors 2003, 17: 287-296.
34. Chien CM, Yang SH, Yang CC, Chang LS, Lin SR. Kardiotoksiin III kutsub inimese HL-60 leukeemiarakkudes esile c-jun N-terminaalse kinaasist sõltuva apoptoosi. Cell Biochem Funct 2008, 26: 111-118.