Narratiivne ülevaade probiootikumide kasulikust mõjust kodulindudele: ajakohastatud teadmised, 2. osa
Jun 06, 2023
Rümba tunnused
Kana rinna ja reielihaste värviomadusi on hinnatud ka Haščík jt uuringus. (2014), kus mesilaste õietolmu ekstraktid lisati broilerite söödasse. Parameetrid mõõdeti 45 minutit pärast surma. Selle tulemusena erinesid mitmed väärtused oluliselt selle uuringu väärtustest. Reielihase ja rinna väärtused olid vastavalt 52.31-53.96 ja 49.38-52.5. Samuti määrati reielihaste ja rindade väärtused vastavalt 4.53-7.38 ja 0.98-2.05. Pealegi oli see rinna- ja reielihaste puhul vastavalt 7.{15}}.52 ja 5.17 -13.56.
Rühmade maksa-, südame- ja kõhurasva massis leiti ainult statistiliselt olulisi erinevusi. Mõlemal probiootilisel rühmal oli suurem kõhurasva tase. See võib olla tingitud asjaolust, et mõlemad rühmad lõpetasid kasvu viienda nädala lõpus ja et eelmisel nädalal tarbitud toit kandus tõenäoliselt üle lipiidide ladestumisele. Probiootiline ravi broileritel ei mõjutanud kõhu lipiidide kaalu (Alp et al., 1993).
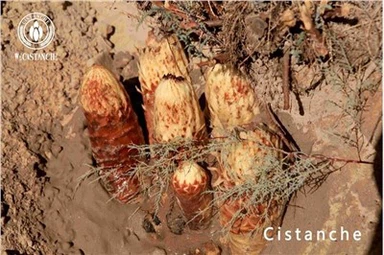
Kõhurasva ja immuunsuse vahel on tugev seos. Liigne kõhurasv võib põhjustada kroonilist põletikku ja põletikuline reaktsioon võib pärssida immuunsüsteemi talitlust, mille tulemuseks on immuunsuse vähenemine. Kõhurasva kogunemine vabastab ka hormoone ja tsütokiine, mis mõjutavad immuunsüsteemi negatiivselt. Lisaks võivad lümfotsüüdid inimkehas koordineerida ka rasvade ainevahetust ja immuunvastuseid, transportides ja eritades selliseid aineid nagu lipiidid ja madala tihedusega lipoproteiine (LDL). Seetõttu on tervisliku talje ja puusa suhte säilitamine ja kõhurasva kogunemise vähendamine immuunsüsteemi nõuetekohase toimimise säilitamiseks kriitilise tähtsusega. On näha, et peame immuunsust parandama. Cistanche'il on immuunsuse parandamisel väga oluline mõju. Lihapasta on rikas mitmesuguste antioksüdantsete ainete poolest, nagu C-vitamiin, C-vitamiin, karotenoidid jne. Need koostisosad võivad eemaldada vabu radikaale, vähendada oksüdatiivset stressi ja parandada immuunsust. immuunsüsteemi resistentsus.

Click cistanche tubulosa eelised
Lisaks broilerisöödale oli probiootikumidel müügieas olulisi eeliseid korrastamise ja rümba protsendi osas (Soliman et al., 2003). Pelicia et al. (2004) näitasid, et bakteriaalse päritoluga prebiootikumide kasutamine ja nende kombineerimine pärmipäritolu prebiootikumidega on vabapidamisega broilerikanade jaoks elujõulised võimalused tänu paranenud rümbatoodangule. Kumar et al. (2003) uurisid probiootikumi Lactobacillus acidophilus andmise mõju broilerite söödale annuses 1,0 g/kg rümba parameetritele. Täiustatud rühmades ilmnes siseorganite (neerude ja maksa) keskmiste väärtuste oluline tõus võrreldes kontrolliga.
Lisaks on Kalavathy et al. (2003) uurisid, kuidas kaheteistkümne Lactobacillus spp. mõjutas kõhurasva teket broileritibudel alates 1-42 päeva vanusest. Nad näitasid, et võrreldes kontrollrühmaga vähendas probiootiline ravi 28 päeva pärast ladestunud kõhurasva kogust.
Vicente et al. (2005), põhjustas L. reuteri kasutamine kalkunite suhtelise soolekaalu vähenemise ja lühema, väiksema soolestiku. Safalaoh (2006) leidis, et sööda täiendamine mikroobsete preparaatidega vähendas oluliselt lindude lipiidide sisaldust, mis on määratud kõhu rasvasisaldusega. Vastavalt Çelik jt. (2007) suurendasid probiootikumide toidulisandid ja orgaanilised happed dieedile maksa, jäme- ja peensoole ning tühja kõhulihase kaalu.
Lisaks näitasid Fayed ja Tony (2008), et probiootilise segu (Biovet-YC), sealhulgas pärmikultuuride ja Lactobacillus tüvede segude kasutamisel paranes oluliselt broilerikanade maksa kaal ning sideme ja rümba omadused. Lisaks Abaza et al. (2008) näitasid, et B. subtilis'e ja B. licheniformiga antud tibude toidus oli kõhu lipiidide protsent palju madalam kui toidulisandita rühmas. Alloui ja Hadef (2008) kinnitasid, et 56. päeval sisaldasid kõhurasvad ja kaste ühepäevast ISA 15, mida toideti peaaegu kaks kuud soja-maisi toiduga, mis oli integreeritud Pediococcus acidilactici'ga või ilma (109 CFU/kg sööda kohta). Broilerite rümba tootmist ja kasvuvõimet suurendas positiivselt P. acidilactici lisamine (Chafai, 2006).
Probiootikumid ei avaldanud märgatavat mõju sideme absoluutsele kaalule, sideme protsendile, südamele, kõrile ega kõhunäärmele (Abo-Mahara et al., 2010). Seevastu nende leiud näitasid südame protsendi paranemist ja maksa protsendi märkimisväärset langust, kuna nende toidukordi täiendati 0,1-protsendiliste probiootiliste Super Bio-Budsidega. B. subtilis'e (CHCC3810-DSM 17299) lisamine tasemel 2,08 x 10⁸ cfu/g toidule tõi kaasa absoluutse ja maksa protsendi märkimisväärse vähenemise (Molnar et al., 2010).
Vastavalt Brzóska jt. (2010), suurendas broilerite söötmine Pediococcus liikidega märgatavalt nii tapa- kui ka kanade rümba kaalu (P<0.01). Contrarily, the research of Abd El-Gawad et al. (2004) gave two doses of crude protein, either with or without Zinc Bacitracin (Zinc B.) and/or one of three probiotics, including; Premalac, Biobadus, or Lacture. Their findings showed that crude protein or other studied feed ingredients did not significantly impact the carcass properties. However, the values of the effective microorganisms (EM) in supplied birds were substantially higher than those of the control group, with 69 ±5 g and 67 ±6 g, respectively, at 42 days of age (Safalaoh, 2006), even though there were no statistical differences in the dressing percentages among the microbial preparation groups and the control group.
Kõhurasvade osas 56. päeval ei leidnud Alloui ja Hadef (2008) statistiliselt olulisi erinevusi kontrollrühma ja kanade vahel, kes olid juba saanud P. acidilacticit sisaldavat lisatoitu 109 cfu/kg sööda kohta. Lisaks on Abaza et al. (2008) näitasid, et B. subtilis'e, S. cerevisiae ja B. licheniformiga rikastatud tibud ei mõjutanud sisikonna ja apreteerimise protsenti. Samuti ei avaldanud toidulisandid probiootikumide hulka kõhupiirkonna rasvade kogust ega rasvasaagist, samuti proventriculuse, maksa ja mao suhtelist kaalu (Ibrir et al., 2008).
Veelgi enam, Midilli et al. (2008) vaatlesid probiootikumide või prebiootiliste toidulisandite mõju broilerite kasvuvõimele. Nad leidsid, et toiduga saadavatel probiootikumidel või prebiootikumide lisamisel ei olnud kontrollrühmaga võrreldes märgatavat mõju rümba kaalule. Awad et al. (2009) näitasid võrreldavat, kuid mitte olulist rümba protsendi vähenemist broileritel, keda toideti B. subtilis'e toidulisandiga toiduga võrreldes kontrollbroileritega. Probiootikumide lisamine broileritibude söödale ei avaldanud märgatavat mõju rümba kvaliteedile (Khani ja Hosseini, 2008; Mohamed ja Bahnas, 2009; Taklimi et al., 2010). Samuti ei näidanud Pediococcus'e liikide lisamine olulisi erinevusi jalgade ja rinnalihaste protsendi või kaalu osas (Brzóska et al., 2010).
Seedetrakti ensüümid
Näidati, et probiootikumid parandavad munevate Jaapani vuttide antioksüdantide resistentsuse mehhanismi. See reaktsioon võib olla seotud probiootikumide võimega indutseerida teatud komponentide tootmist, mis püüavad kinni reaktiivseid hapniku liike, kelaativad vabu radikaale ja piiravad nende tsütotoksilist toimet (Abdel-Moneim et al., 2020a). Vastavalt Wang et al. (2017 b), suurendavad probiootikumid antioksüdantsete ensüümide, sealhulgas GPx ja SOD aktiivsust, edendades lindude antioksüdantide kaitsesüsteemi. Lisaks võib probiootikumide antioksüdatiivne ensüümsüsteem mängida olulist rolli peremeesorganismi antioksüdantse oleku suurendamisel (Abdel-Moneim et al., 2020 b).
Hiljuti paranenud seedetrakti ensümaatiliste aktiivsuste jõudlus võib olla tingitud peremeesorganismi toodetud endogeensete ensüümide ja probiootikumide toodetud eksogeensete ensüümide kumulatiivsest mõjust. Wang ja Gu (2010) märkasid amülaasi ja proteaasi aktiivsuse olulist tõusu pärast Arbor Acresi broilerite toidulisandite lisamist B. coagulans NJ0517-ga. Kasvu kiirenemist võib seletada rasva ja tärklise paranenud seedimisega amülolüütiliste ja lipolüütiliste ensüümide suurenenud aktiivsuse tõttu.
Seevastu probiootikumid ei mõjutanud proteaasi ensüümi aktiivsust, nagu on näidanud (Zhigang et al., 2014; Zhang et al., 2016). Pealegi ei toimunud probiootilisel töötlemisel olulisi muutusi lipolüütiliste, proteolüütiliste ja amülolüütiliste ensüümide ensümaatilises aktiivsuses (Palamidi et al., 2016; Rodjan et al., 2018). Seedeensüümide aktiivsuse praegune suurenemine võib olla põhjustatud peremeesorganismi tekitatud endogeensete ensüümide ja probiootiliste bakterite vabanenud ensüümide panusest (Saleh et al., 2014). Proteaasi, lipaasi ja amülaasi suurenenud aktiivsus parandas valkude, lipiidide ja süsivesikute seedimist, mis võib anda mõningase ülevaate kasvu kiirendamisest.

Vere biokeemia
Probiootilised bakterid võivad suurendada konjugeerimata sapphapete tootmist, mis võib aidata reguleerida seerumi kolesteroolisisaldust, mis on sapphapete eelkäija (De Smet et al., 1994). Kolesterooli taseme langus on nende hapete suurenenud tootmise tagajärg. Pärast probiootikumide tarbimist täheldati kukkedel ja rottidel kolesteroolitaseme olulist langust vereseerumis ja maksas (Hosono, 2001). Vastavalt Abd El-Azeem jt. (2001), Jaapani vuti verenäitajad, sealhulgas; globuliini, albumiini, GPT, üldkolesterooli, A/G suhet ja AST-d mõjutasid mikroobsed probiootikumid märkimisväärselt, samas kui teisi parameetreid see ei mõjutanud. Järgmises uuringus väitis Abdel-Azeem (2002), et bioloogiliste lisanditega (S. cerevisiae) rikastatud toiduga broileritel oli suurem globuliini-, albumiini- ja plasmavalgu kogusisaldus. Sellegipoolest oli üldlipiidide, kolesterooli ja A/G suhe madalam kui töötlemata kontrollis.
Pärmi lisamine põhjustas vere kolesteroolitaseme tagasihoidliku languse võrreldes mittelisandita kontrolliga. Pärm aga ei mõjutanud negatiivselt maksafunktsiooni AST ja ALT osas (Soliman et al., 2003). Broileritibudele anti probiootilist lisandit (L. acidophilus) söötmisnormiga 1,0 g/kg ja uuriti mõju verekomponentidele (Kumar et al., 2003). Nad näitasid, et 45 päeva vanuselt oli ravitud lindudel madalam keskmine ASAT ja ALAT sisaldus, triglütseriidide tase ja madala tihedusega lipoproteiin (LDL) kui kontrolllindudel. Siiski ei näidanud seerumi suure tihedusega lipoproteiin (HDL) olulisi muutusi.
Probiootilised toidulisandid mõjutasid positiivselt peremeeslooma tervist, vähendades kanade vere kolesteroolitaset (Kim et al., 2003; Kurtoglu et al., 2004; Hajjaj et al., 2005). El-Yamny ja Fadeli (2004) andmetel suurenesid seerumi üldvalgu, A/G suhe ja albumiini sisaldus pärmi lisamisel annustes 0,2, 0,4 ja 0,6 protsenti; AST ja ALT aga ei muutunud.
Samal ajal vähenes oluliselt kolesterooli ja lipiidide tase. On näidatud, et probiootiline tüvi E. faecium M74 ja L. acidophilus alandavad plasma kolesterooli kontsentratsiooni (De Roos ja Katan, 2000). Lactobacillus võib seedida kolesterooli molekule; E. faecium M74 aktiivsuse mehhanism on aga endiselt ebaselge (Pereira ja Gibson, 2002). On näidatud, et mitmed probiootikumid, mis sisaldavad Bacillus spp., Rhdobacter spp., Lactobacillus spp. ja A. oryzae, vähendavad broilerikanade vereseerumis kolesterooli (Yoon et al., 2004; Capcarova et al., 2010). Tuginedes Siam et al. (2004), munakanu toideti Bifidobacterium bifidum (B) või Lactobacillus acidophilus (L) vedelkultuuridest või nende segust koosneva toiduga, 50 g L pluss 50 g B/kg sööda kohta, vähendas üldlipiidide ja kolesterooli taset. oluliselt pärast kahenädalast ravi ja see suundumus jätkus kogu katse vältel. Teatud omadused vähenesid, kui neid täiendati (B), (L) või (L pluss B), võrreldes kontrollrühmaga. Vere üldlipiidide sisaldus langes vastavalt 5,2, 6,4 ja 5,8 protsenti, samas kui vere kolesteroolitase langes 55,6, 58,3 ja 50,0 protsenti.
Abd El-Gawad et al. (2004) teatasid, et probiootikumide lisamine parandas albumiini ja üldvalgu keskmisi väärtusi ning vähendas kolesterooli, ALAT, AST ja üldlipiidide keskmisi väärtusi. Samuti täiendades oluliselt broilerite dieeti probiootikumidega (P<0.05) enhanced globulin, albumin, and total protein under both normal and high-temperature settings. Besides, total lipids and plasma cholesterol values decreased, though AST and ALT enzymes weren't impacted (Tolba et al., 2004).
Vastavalt Kalavathy jt. (2006), broileritel, kes tarbisid kuuendal elunädalal Lactobacillust sisaldavat dieeti, vähenes kolesterooli kontsentratsioon nende rümpades ja maksas. Mikroobse preparaadiga nagu tõhusad mikroorganismid (EM) tarnitud lindudel oli 42 päeva pärast madalam vere kolesteroolitase kui kontrollrühmal (Safalaoh, 2006). Samuti oli broilerite vere kolesteroolisisaldus madalam kui kontrollrühmal, kes tarbisid 50 mg mitmetüveliste probiootikumide kilogrammi kohta või 1 g pärmi kilogrammi sööda kohta (Asli et al., 2008). Samamoodi leiti, et probiootikumidega täiendatud kanade vere üldkolesterooli kontsentratsioon oli 42- päeva vanuselt tunduvalt madalam kui kontrollkanadel (Thongsong et al., 2008). Orgaanilised happed, probiootikumid ja nende segud suurendasid märkimisväärselt valgu üldtaset ja vähendasid kolesterooli kontsentratsiooni võrreldes kontrollrühmadega (Abo-Mahara et al., 2010). Salim et al. (2011) leidsid, et probiootiliste tüvede (L. acidophilus ja B. bifidum) lisamine töötlemata aflatoksiinidega ravitud rühmale võrreldes aflatoksiini rühmaga parandas üldvalgu taset. Albumiin on oluliselt paranenud (P<0.05), demonstrating the probiotic bacteria's capacity to decrease the toxicity caused by aflatoxins. Contrarily, Santoso, et al. (2001) concluded that broiler chicks that were fed with a commercial diet including fermented probiotic product from B. subtilis at 0.5, 1.0, and 2.0% for 21 days between 7 and 28 days of age did not influence the content of plasma cholesterol, phospholipids, and triglycerides.
Kurtoglu et al. (2004) väitsid ka, et probiootilise toime spetsiifilisus seerumi kolesteroolitasemele ilmnes alles 30. ja 60. päeval. Kolesterooli kohta uurisid Langari et al. (2008) leidsid samad tulemused, kuigi seerumi triglütseriidide tasemes oli vähe erinevusi. Broileritibud, kellele anti sööta koos S. cerevisiae'ga või ilma, millele oli lisatud 1 g/kg sööta, ei avaldanud märkimisväärset mõju valgu, globuliini või albumiini üldsisaldusele (El-Ghamry et al., 2002). Abdel Azeemi (2002) sõnul näitasid broilerid, keda toideti bioloogiliste lisanditega toiduga, kõrge vere üldplasmavalgu, globuliini, hemoglobiini ja albumiini tase.
Siiski ei mõjutanud S. cerevisiae (1 g/kg dieet) broileritibude sööda puhul ALT ja AST maksafunktsioone oluliselt. Erinevalt kontrollrühmast leiti üldlipiidide, A/G suhte ja kolesterooli taseme langus (eriti pärmirühmas). Maksafunktsiooni ALT ja AST mõõtmised näitasid, et erinevalt ravimata kontrollrühmadest ei avaldanud pärmil negatiivset mõju (Soliman et al., 2003). Pärmi lisamine kontsentratsioonides 0,2, 0,4 või 0,6 protsenti suurendas vere üldvalgusisaldust, A/G suhet ja albumiini, kuid ei mõjutanud ALT ega AST taset (El-Yamny ja Fadel, 2004; Tollba et al. ., 2004). Vastavalt Abaza jt. (2008), S. cerevisiae, B. Licheniformi ja B. subtilis'e lisamine broilerite söötadele kogu kasvu vältel ei mõjutanud oluliselt vere üldvalgu, kolesterooli, globuliini ja albumiini taset. Teised teadlased märkisid, et probiootiliste Avian Plus söödalisandite lisamine ei avaldanud märkimisväärset mõju vereplasma parameetritele, nagu globuliini, üldvalgu, albumiini, ALT ja AST tasemetele (Sherif, 2009; Rabie et al., 2010). Orgaaniliste hapete, probiootikumide ja nende segude lisamine broileritibude söödale ei mõjutanud oluliselt AST ja ALT kontsentratsiooni (Abo-Mahara et al., 2010).
Tähelepanuväärselt suurendas B. subtilis'e lisamine albumiini kontsentratsiooni veres ja kogu valgu kontsentratsiooni veres, samal ajal kui see vähendas lineaarselt ALAT, AST, uurea-N ja kreatiniini taset. Kuigi B. subtilise tase toidus ei mõjutanud ALP, globuliini ja kusihappe taset veres ruut- ega lineaarselt. Lisaks näitasid rühmad BS5, BS7 või BS9 seerumi VLDL-i kontsentratsiooni lineaarset langust, samas kui LDL-i kontsentratsioon muutus vähe või üldse mitte. Tulemused näitasid, et nendes ravitud rühmades ilmnes HDL-i taseme lineaarne tõus (Abdel-Moneim et al., 2020 a). Lisaks märkisid nad, et kõik B. subtilis'e toidulisandid vähendasid vere glükoosisisaldust lineaarselt ja ruutkeskmiselt võrreldes toidulisandita rühmaga. Samal ajal näitasid T3 ja T4 aktiivsused lineaarset suurenemist täiendatud rühmades võrreldes kontrolliga. T3 ja T4 tase oli kõrgeim ja glükoosisisaldus madalaim rühmades BS7 ja BS9 (Abdel-Moneim et al., 2020 a). B. subtilist sisaldava Jaapani vuttide kasvatamise antioksüdantne toime paranes oluliselt. Kõik uuritud B. subtilise toidutasemed vähendasid seerumi MDA sisaldust võrreldes töötlemata kontrolliga. Samal ajal olid CAT ja GSH aktiivsused lineaarselt kõrgenenud rühmades BS5 ja BS (AbdelMoneim et al., 2020 b).
Histomorfomeetria
Ebeidi jt tulemused. (2019) teatasid, et suurenenud villi kõrgus ja parem niude areng viitavad soolestiku villide aktiivsusele ning on seotud paranenud seedeensüümide aktiivsusega ja toitainete imendumisega, mis parandab kasvuvõimet. Broileritibude toitainete imendumine võib olla halb ja nende jõudlus võib olla ebapiisav krüpti liigse sügavuse tõttu (Xu et al., 2003; Abd El-Moneim et al., 2019 b). Kuigi märgati, et äsja koorunud tibude paranenud villi kõrguse ja B. bifidum'i ja B. longumiga in-ovo nakatamise vahel on seos (Abd El-Moneim, 2017; Abd El-Moneim et al., 2019 a). Veelgi enam, probiootikumidega täiendatud rühmad näitasid vastavalt (Olnood et al., 2015; Abdel-Moneim et al., 2019 a) oluliselt suuremat villi pikkuse / krüpti sügavuse ja villuse pikkuse suhet kui kontrollrühmadel.

Soolestiku bakterite sisaldus
Loomade ja inimeste seedesüsteemis on probiootilised bakterid nagu Bifidobacterium spp. ja Lactobacillus spp. kirjeldatakse kui autohtoonset mikrobioot. Patogeensete bakterite adhesioon võib põhjustada aktiivset kasvu ja koloniseerumist, kuna soolestiku lima ja epiteelirakud on kõige tundlikumad. See mikroobide adhesioon on patogeeni ja epiteelirakkude ühenduse jaoks hädavajalik (Ribet ja Cossart, 2015). Toiduahelad (muna, piim, liha jne) võivad olla saastunud soovimatute patogeensete bakteritega nagu E. coli, Shigella, Salmonella ja Listeria, põhjustades terviseprobleeme (USA FDA, 2016). Sellest tulenevalt peetakse bakterite seedetrakti limaskestale kinnitumise vältimist edukaks strateegiaks toidu kaudu levivate haiguste riski vähendamisel (Kim et al., 2015; Thöle et al., 2015). Serafini et al. (2013) kasutasid epiteeli soolerakkude monokihte (nagu HT-29 ja Caco-2), et uurida B. bifidum'i inhibeerivat toimet kahjulike bakterite, nagu Cronobacter sakazakii ja E. coli, enteraalsele kohanemisomadustele. . Piimhappebaktereid on läbi aegade kasutatud mitmesugustes kasulikes toitudes. Probiootikumidel on järgmised peamised funktsionaalsed mõjud: (i) antimikroobsete peptiidide, näiteks bakteriotsiinide süntees (Martinez et al., 2013; Mandal et al., 2014), rasvade ladustamise ja toidukiudude seedimise juhtimine (Aronsson et al., 2010); DiBaise et al., 2012), limaskesta immuunsuse modulatsiooni (Hardy et al., 2013) ja patogeenide kolonisatsiooni vähenemist, mis on tingitud soolestiku mikrofloora juhtimisest kahjulike mikroorganismide konkureeriva välistamise kaudu (Yu et al., 2011; Kim et al. , 2014; Li et al., 2014).
Üks probiootikumide viiest peamisest funktsionaalsest omadusest on bakterite sidumine seedetrakti limaskestaga (joonis 2), mis arvatakse olevat otsustava tähtsusega patogeenide otseseks pärssimiseks ja vajalik immuuntegevuse tõhusaks juhtimiseks, pakkudes kaitsev roll soolepatogeenide suhtes (Van Tassell ja Miller, 2011). Probiootikumid peavad selles staadiumis kleepuma käärsoolerakkudele, et koloniseerida peremeesorganismi seedetrakti edukalt mikroobidega (joonis 3). Kuna adhesioon on vajalik aktiivseks paljunemiseks ja resistentsuse tagamiseks seedetraktist jäätmetena peristaltika kaudu, on see tunnistatud üheks oluliseks aktiivsete probiootiliste tüvede sõelumisparameetriteks (Duary et al., 2011). Bakterite epiteelirakkudele kinnitumise mehhanisme võib klassifitseerida I mittespetsiifilise kinnitumise alla, kui võtta arvesse raku välispindade füüsikalis-keemilisi omadusi; või (ii) spetsiifilist kinnitumist, kui spetsiifilised molekulid ekspresseeritakse bakteriraku membraanile ja seostuvad otse limaskesta välispindade retseptori saitidega (Duary et al., 2011; Van Tassell ja Miller, 2011). Selle adhesioonivõime määravad hüdrofoobsed omadused, ioonide kontsentratsioon, pH ja füüsikaline morfoloogia (Polak-Berecka et al., 2014). Need parameetrid mõjutavad oluliselt bakterite kleepumist peremeessoole kudedele, mis näitab bakterite ja limaskesta pinna vahelise esialgse adhesiooni keerukust.
Bakteripindade keemiline struktuur mängib kriitilist rolli varases kokkupuutes sooletrakti limaskesta pinna ja epiteelirakkudega. Rakupinna hüdrofoobsuse uurimist kasutatakse tavaliselt mikroobide välispinna füüsikalis-keemiliste omaduste hindamiseks (Krasowska ja Sigler, 2014). On näidatud, et suurenenud hüdrofoobsusega mikroobitüved kleepuvad käärsoolerakkudele edukamalt kui hüdrofiilsed (Duary et al., 2011; Van Tassell ja Miller, 2011). Hüdrofoobsetel mikroorganismidel on märkimisväärne kleepuv toime elututele pindadele, nagu süsivesinikud ja mittepolaarsed vedelikud, samas kui hüdrofiilsetel rakkudel on piiratud adhesiivne toime (Duary et al., 2011; Krasowska ja Sigler, 2014).
Kihtide produktiivne jõudlus
Vastavalt Kurtoglu jt. (2004), kui 27-nädala vanustele kihtidele anti segu B. licheniformisest (3.2 109 /g probiootikumist) ja B. subtilisest (3.2 109 /g probiootikumist) järgmise 90 päeva jooksul suurenes nende munatoodang. Veelgi enam, 20–44 nädala vanuselt leiti munade massi oluline suurenemine ja kihtidele manustati laktobatsillidega rikastatud dieeti (Ramasamy et al., 2009). Lisaks andis kihtide rühm, millele anti kuumusega inaktiveeritud L. salivarius'e ja B. subtilis'e segu, oluliselt rohkem mune päevas kui toidulisandita kontroll (Zhang et al., 2012).
Probiootikumide lisamine munevate vuttide dieeti suurendas munade massi (EW) ja munade arvu (EN) võrreldes kontrollrühmaga (El-Moneim ja Sabic, 2019 b). Huvitaval kombel Jha et al. (2020) teatasid, et probiootikumid suurendavad lisaks munakanade toitumisele nende igapäevast söödatarbimist, suurendavad nende lämmastiku ja kaltsiumi peetust ning lühendavad nende soolestiku pikkust, suurendades munemissagedust. Seevastu Balevi jt. (2001) ei näidanud EN ega EW erinevusi erinevate bakteritüvede, probiootikumide annuste ja kanade vanuse tõttu. Samuti ei avaldanud probiootikumi B. subtilise (0,10 protsenti) lisamine munevate vutitoidule kahenädalase ravi jooksul EM-le ega EW-le olulist mõju võrreldes ravimata rühmaga (Manafi et al., 2016). Peale selle, kaheksanädalane ravi Lactobacillus spp. veevarustuses ei mõjutanud munade tootlikkust (Naseem ja King, 2020).
Hiljuti teatati, et broilerikasvataja sööda täiendamine B. subtilis, PB6-ga (2 × 10⁷ cfu/g) 1 g/kg dieediga suurendas märgatavalt munatoodangut kaubanduslikes farmitingimustes. Dieetravi ei mõjutanud aga muna ega kehakaalu (Darsi ja Zhaghari, 2021).
Viljakus ja kooruvus
Paljud uuringud näitasid, et Jaapani vuttide elujõuliste munade kooruvus (H protsenti) ja viljakus (F protsenti) jäid vahemikku 8–52 nädalat, 40.00–70,34 protsenti kuni 48.00–94. vastavalt .00 protsenti (Seker et al., 2004). Teatati, et probiootikumid mõjutasid positiivselt munade koorumist ja produktiivsuse määra broilerikasvatajatel vanuses 22- kuni 49-nädalane. Siiski ei näidatud positiivset kasu munarakkude viljakusele (Bozkurt et al., 2011).
Lisaks Mojgani et al. (2020) leidsid, et vutid, kellele anti B. megaterium (108 cfu/ml), vähendasid oluliselt embrüonaalset suremust umbes 10 protsenti ja suurendasid H protsenti umbes 12 protsenti. Samuti Beck et al. (2019) märkis, et torumunade protsent on tunduvalt väiksem kui kontrollrühmas. Seevastu Ayasan (2013) tegi kindlaks, et toidulisandid valgu, kaubandusliku probiootikumiga, annustes 0,05 ja 0,10 protsenti toidetud kilogrammi kohta, ei mõjutanud Jaapani vutikihtide viljakate munade H- ja F-protsenti võrreldes vuttide kihtidega. ravimata rühm. Vastavalt Ballou jt. (2016), probiootikumide in-ovo lisamine kaitseb tibu väliskeskkonnas kahjulike bakteritega kokkupuutumise eest. Hiljutises uuringus näitasid Darsi ja Zhaghari (2021), et aretusbroilerikanade söötmine B. subtilist, PB6 (2 × 10⁷ cfu/g) sisaldavate toidulisanditega 1 g/kg söödava toiduga suurendas oluliselt koorumist ja munade koorumisprotsenti.
Muna kvaliteedi omadused
Probiootikume sisaldav Jaapani vuttide toit suurendas munakoore kaalu (Ayasan et al., 2006). Pärast probiootikumi manustamist vastavalt 10g/100kg dieedile ja 10g/200L joogiveele suurenes lindude munakoore kaal kontrollrühmaga võrreldes oluliselt, 1,47-lt 1,54-le (Lokapirnasari et al., 2019). Kuid B. subtilise lisamine vutitoidule ei mõjutanud Haugh'i ühikuid ega munakoori (Manafi et al., 2016).
Hiljuti uuriti kaubanduslikke mitmetüvelisi probiootikume nende mõju kohta munade kvaliteediomadustele ja tootmise efektiivsusele. Võrreldes kontrollrühmaga näitasid tulemused, et toidulisandite lisamine parandas erinevaid munatootmisega seotud tunnuseid, sealhulgas muna suurust ja kaalu, munakollase ja albumiini massi ning munakoore tugevust ja paksust (Jha et al., 2020). Kuid Saksrithai et al. (2020) eeldasid, et White Leghorn munakanade munade kvaliteedinäitajaid ei mõjutanud probiootikumide segu, sealhulgas; L. paracasei, L. rhamnosus ja L. plantarum, mis sisaldavad (1 × 10¹² cfu/kg toidetud dieedi kohta). Mõtet, et mikroelemendid võivad mikroobsete toidulisandite kaudu parandada albumiini kvaliteeti, toetavad munakanade mineraalsete plasmatasemete erinevused, kellele manustati mikroobikultuure. Teisest küljest jõudsid Darsi ja Zhaghari (2021) järeldusele, et B. subtilis PB6 lisamine broileri toidule koos (2 × 10⁷ cfu/g) 1 g/kg söödava toiduga suurendas muna Haugh ühikut ja suurendas oluliselt munakoore paksust. kaubanduslikud talutingimused.
Järeldused
Probiootikumid on lai elusorganismide kategooria, mida kasutatakse paljude haiguste raviks. Probiootikumid, tuntud ka kui otsetoidetavad mikroobid, on kasulikud bakterid, mis toimivad peamiselt kodulindude seedetraktis, et peremeesorganismi kasu tuua. Probiootikumide lisamine toidusse võib soodustada loomade jõudlust ja tervist, parandades soolestiku tervist ja toitainete imendumist. Näiteks on näidatud, et probiootikumide lisamine on kasulik kodulindudele, tugevdades nende immuunsüsteemi, muutes nende struktuuri ja suurendades tsütokiinide tootmist, mis kaitsevad soole limaskesta barjääri patogeenide eest. Kõik need parameetrid peegeldavad positiivselt kodulindude tervist, tootmist ja paljunemist.

Huvide konfliktid
Kõik autorid kinnitavad, et neil ei ole huvide konflikte, mis võiksid seda käsikirja sobimatult mõjutada.
Autori panus
Kõik autorid panustasid selle ülevaateartikli kirjutamisse võrdselt. Kõik autorid lugesid selle käsikirja lõppversiooni läbi ja kiitsid selle heaks.
Andmete kättesaadavuse avaldus
Andmed pole saadaval.
Tunnustus
Autorid tänavad abi eest oma vastavaid instituute ja ülikoole.
Viited
1.Abaza IM, Shehata MA, Shoieb MS, Hassan II (2008). Mõnede looduslike söödalisandite hindamine kasvavate tibude toitumises. Int. J. Poult. Sci., 7: 872–879.
2. Abd El‐Hack ME, El‐Saadony MT, Shafi ME, Qattan SY, Batiha GE, Khafaga AF, Abdel‐ Moneim AME, Alagawany M. (2020). Probiootikumid linnusöödas: põhjalik ülevaade. J. Anim. Physiol. Anim. Nutr., 104: 1835–1850.
3. Abd El‐Hack ME, El‐Saadony MT, Shafi ME, Qattan SYA, Batiha GE, Khafaga AF, Abdel‐Moneim AME, Alagawany M. (2020). Probiootikumid linnusöödas: põhjalik ülevaade. J. Anim. Physiol. Anim. Nutr., 104: 1835–1850.
4. bd El-Hack ME, Samak DH, Noreldin AE, El-Naggar K., Abdo M. (2018). Probiootikumid ja taimse päritoluga ühendid kui keskkonnasõbralikud ained linnusöödas mikroobsete toksiinide pärssimiseks: põhjalik ülevaade. Keskkond. Sci. Saasta. Res., 25: 31971–31986.
5.Abd El-Hack ME, Mahgoub SA, Alagawany M., Ashour EA (2017). Tootlikkuse parandamine ja munakanade väljaheidete kahjulike heidete vähendamine, söötes sorteeritud maisi DDGS-i koos Bacillus subtilis probiootikumiga või ilma. J. Anim. Physiol. Anim. Nutr., 101: 904–913.
6.Abd El-Moneim E. (2017). Tõhusa bakteripreparaadi (Bifidobacterium spp.) in ovo süstimise mõju mõnele kodulindude produktiivsuse ja füsioloogilisele tunnusele. Ph.D. Doktoritöö. Ain Shamsi Ülikool, Põllumajandusteaduskond Kairo, Egiptus.
7.Abd El-Moneim EA, El-Wardany I., Abu-Taleb AM, Wakwak MM, Ebeid TA, Saleh AA (2020). Bifidobacterium bifidum'i ja Bifidobacterium longum'i in-ovo manustamise hindamine broilerite jõudluse, niudesoole histomorfomeetria, vere hematoloogiliste ja biokeemiliste parameetrite põhjal. Probiootikumid Antimikroobsed. Prot., 12: 439–450.
8. Abdel-Azeem F. (2002). Seedimine, neomütsiini ja pärmi lisamine broileritoidus Egiptuse suvetingimustes. Egiptus Poult. Sci., 22: 235–257.
9.Abdel-Azeem F., Faten A., Nematallah G. (2001). Kasvava Jaapani vuti kasvujõudlus ja mõned vereparameetrid, mida mõjutavad erinevad valgutasemed toidus ja mikroobsete probiootikumide lisamine. Egiptus Poult. Sci., 21: 465–489.
10.Abdel-Moneim AME, Elbaz AM, Khidr RES, Badri FB (2019 a). Bifidobacterium spp. in ovo inokuleerimise mõju. broilerite kasvuvõime, kilpnäärme aktiivsuse, niudesoole histomorfomeetria ja mikroobide loenduse kohta. Probiootikumid Antimikroobsed. Proteins, 12: 873–882.
11.Abdel-Moneim AME, Elbaz AM, Khidr RES, Badri FB ( 2020 a). Bifidobacterium spp. in ovo inokuleerimise mõju. broilerite kasvuvõime, kilpnäärme aktiivsuse, niudesoole histomorfomeetria ja mikroobide loenduse kohta. Probiootikumid Antimikroobsed. Proteins, 12: 873–882.
12.Abdel-Moneim AME, Selim DA, Basuony HA, Sabic EM, Saleh AA, Ebeid TA (2020 b). Bacillus subtilis eoste toidulisandite mõju Jaapani vutilindude kasvuvõimele, oksüdatiivsele seisundile ja seedeensüümide aktiivsusele. Trop. Anim. Health Prod., 52: 671–680.
13.Abdel-Moneim A.-ME, Selim DA, Basuony HA, Sabic EM, Saleh AA, Ebeid TA (2019 b). Bacillus subtilis eoste toidulisandite mõju Jaapani vutilindude kasvuvõimele, oksüdatiivsele seisundile ja seedeensüümide aktiivsusele. Trop. Anim. Health Prod., 52: 671–680.
14.Abdel-Samee M., Abdel-Hakim A. (2002). Broileritibude jõudlus, mida mõjutab kodulindude kõrvalsaaduste jahu ja probiootikumide kasutamine. Egiptus. Poult. Sci. J., 22: 745–762.
15.Abdullah N., Jalaludin S., Wong MC, Ho YW (2006). Lactobacillus'e söödalisandi mõju broilerikanade maksa, lihaste ja rümba kolesteroolile, rasvasisaldusele ja rasvhapete koostisele. Anim. Res., 55: 77–82.
16.Abo-Mahara, M., Zeweil, H., Mahmoud, M., Basyony, M., Abd El-Rahman, M. (2010). Mitteantibiootikumide kasvustimulaatorite mõju broilerite jõudlusele, seeduvusele ja rümba kvaliteedile. Proc. XIII. Euroopa linnukasvatuskonverents, 23.–27.08.2010, Tours, Prantsusmaa, lk 1122–1137.
17.Abou-Kassem D., Elsadek, M., Abdel-Moneim A., Mahgoub S., Elaraby G., Taha A., Elshafie MM, Alkhawtani DM, Abd El-Hack ME, Ashour E. (2020). Kahe erinevat tüüpi probiootikumiga (Bacillus toyonensis ja Bifidobacterium bifidum) rikastatud vutitoidu kasvu, rümba omadused, liha kvaliteet ja mikroobsed aspektid. Poult. Sci., https://doi.org/10.1016/j.psj.2020.04.019. Ajakirjanduses.
18.Abou-Kassem DE, Elsadek MF, Abdel-Moneim AE, Mahgoub SA, Elaraby GM, Taha AE, Elshafie MM, Alkhawtani DM, Abd El-Hack ME, Ashour EA (2021). Kahe erinevat tüüpi probiootikumiga (Bacillus toyonensis ja Bifidobacterium bifidum) rikastatud vutitoidu kasvu, rümba omadused, liha kvaliteet ja mikroobsed aspektid. Poultry Sci., 100: 84–93.
19.Ahiwe EU, Dos Santos TT, Graham H., Iji, PA (2021). Kas probiootiline või prebiootiline pärm (Saccharomyces cerevisiae) võib olla alternatiivina söödas sisalduvatele antibiootikumidele tervete või haigust põdevate broilerikanade jaoks?: ülevaade. J. Appl. Poult. Res., 30: 100164.
20. Ahmed ST, Islam MM, Mun HS, Sim HJ, Kim YJ, Yang CJ (2014). Bacillus amyloliquefaciens'i kui probiootilise tüve mõju broilerikanade kasvuvõimele, umbsoole mikrofloorale ja roojaga seotud kahjulike gaaside heitkogustele. Poultry Sci., 93: 1963–1971.
21. Ahmed ST, Mun HS, Islam MM, Kim SS, Hwang JA, Kim YJ, Yang CJ (2014). Mitmetüveliste probiootikumidega kääritatud Citrus junos kõrvalsaaduste mõju broilerite kasvuvõimele, immuunsusele, umbsoole mikrobioloogiale ja liha oksüdatiivsele stabiilsusele. Br. Poult. Sci., 55: 540-547.
22. Alagawany M., Abd El-Hack ME, Farag MR, Sachan S., Karthik K., Dhama K. (2018). Probiootikumide kasutamine antibiootikumide keskkonnasõbralike alternatiividena kodulindude toitumises. Keskkond. Sci. Saasta. Res., 25: 10611–10618.
23. Alagawany M., Abd El-Hack ME, Farag MR, Sachan S., Karthik K., Dhama K. (2018). Probiootikumide kasutamine antibiootikumide keskkonnasõbralike alternatiividena kodulindude toitumises. Keskkond. Sci. Saasta. Res., 25: 10611–10618.
24.Al-Homidan A., Fahmy M. (2007). Kuivatatud pärmi (Saccharomyces cerevisiae) lisamise mõju broilerikanade kasvule, jõudlusele, rümba keemilisele analüüsile, immuunsusele, iileum villi kõrgusele ja bakterite arvule. Egiptus Poult. Sci., 27: 613–623.
25. Alloui O., Hadef S. (2008). Probiootilise söötmise mõju broilerkana jõudlusele ja soolestiku mikrofloorale. Proc. WPSA 1. Vahemere tippkohtumine. Edusammud ja väljakutsed linnukasvatusteaduses, 7–10.05.2008, Porto Carras, Chalkidiki, Kreeka.
For more information:1950477648nn@gmail.com